导图社区 免疫学7:T淋巴细胞及其介导的细胞免疫应答
根据复旦大学出版社出版的《医学免疫学》第七章T淋巴细胞及其介导的细胞免疫应答整理。推荐大家略微修改后再做使用,使用时可收起内容进行自我检测效果更佳。感谢大家的支持!
提示: 本内容由社区用户上传并分享。平台不对内容的真实性、合法性、知识产权归属及是否侵害第三方权利进行事前审核或保证。本内容可能包含受版权保护的图片、字体或其他第三方素材,使用前请自行确认授权范围。
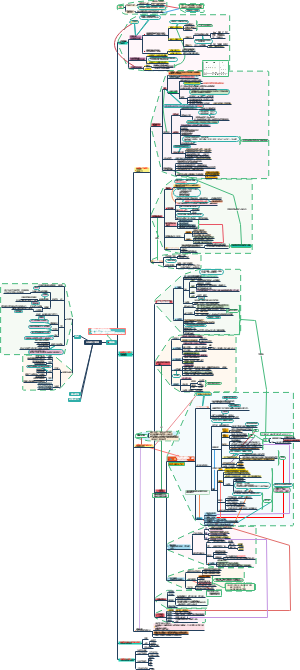
T淋巴细胞及其介导的细胞免疫应答
T细胞表面分子
TCR-CD3复合物
T细胞受体的结构和功能
不能直接识别抗原表位,需要识别抗原肽-MHC复合物
组成
αβγδ四种
胞外区含有V区和C区,V区具有高度多态性,是抗原特异性的基础
抗原特异性和MHC限制性是TCR两大特点
α和β链胞内区短,需要借助CD3或者ζ链传导信号
CD3和ζ链的功能
所有细胞都表达一样的CD3和ζ蛋白
组成
都是异二聚体
CD3有γ、δ、epsilon三种肽链
ζ链通过二硫键形成同二聚体或者异二聚体
胞质区含有ITAM,包括两个YxxL/V区域
被LYK磷酸化后结合含有SH2结构域的ZAP-70从而介导T细胞的活化
CD4和CD8共受体
CD4
单链跨膜蛋白
结合MHC II 的β2结构域
胞膜外区含有4个Ig样结构域
CD8
大多数是由α和β两条链通过二硫键组成的异二聚体
结合MHC I 的α3结构域
胞膜外区各有1个Ig样结构域
功能
辅助T细胞识别pMHC
协助T细胞活化
可以拉进LYK与CD3和ζ蛋白的距离,促进其磷酸化酪氨酸作用
共刺激分子
初始T细胞活化除了识别pMHC以外,还需要共刺激信号。共刺激分子就是为初始T细胞完全活化提供共刺激信号的细胞表面分子及其配体
正性共刺激分子
CD28
同源二聚体
组成型表达于大部分的CD4和CD8T细胞
结合APC表面的B7分子,介导细胞的活化
诱导抗凋亡蛋白的产生
增强T细胞IL-2的分泌
ICOS
表达于活化的T细胞,主要是在CD28之后发挥作用
结合ICOSL,ICOSL也是B7家族的分子
可以诱导T细胞抗凋亡蛋白的产生,但是不能诱导IL-2的产生
在依赖于T细胞的B细胞应答中起到重要作用
CD40L
表达于活化的CD4T细胞
通过促进APC的活化,上调B7分子的表达,从而更好的激活T细胞
通过与CD40的结合,诱导B细胞活化增殖,产生抗体,发生抗体类别的转换,产生记忆性B细胞
与巨噬细胞表面的CD40结合有助于增强巨噬细胞的吞噬活性
负性共刺激分子
CTLA-4
与CD28竞争性结合B7分子,且亲和力更高
表达于活化的CD4和CD8细胞
PD-1
配体有PD-L1和PD-L2
可以抑制T细胞的增殖和IFN-γ等细胞因子的产生
抑制B细胞的增殖、分化及Ig的分泌
黏附分子
LFA-1
可以与ICAM-1结合
当T细胞识别抗原后,活化信号可以改变LFA-1与ICAM-1的亲和力,在T细胞与APC的特异性黏附中起作用
LFA-2(CD2)
在人体中与LFA-3结合
丝裂原受体及其他表面分子
刀豆蛋白A
植物血凝素PHA
常用的T细胞丝裂原
T细胞亚群
根据T细胞所处的活化阶段
初始T细胞
在胸腺发育成熟,到外周,但是没有接受过抗原刺激的T细胞
存活期短
高表达CD45RA和L-选择素CD62L
参与淋巴细胞再循环
可以在外周淋巴器官中受到树突细胞的抗原呈递
效应T细胞
受到抗原刺激发挥效应作用的T细胞
存活期短
高表达CD45RO和CD44,低表达CD62L
不参与淋巴细胞再循环,受到刺激以后到炎症局部发挥作用
记忆性T细胞
受到抗原刺激但是处于静止状态的T细胞
存活期长
可自发缓慢增殖
高表达CD45RA和CD44
介导再次免疫应答
根据表达的TCR类型
αβT细胞
γδT细胞
固有样淋巴细胞
直接识别抗原分子,没有MHC限制性
仅能识别有限的抗原
主要分布于黏膜和皮下组织
接受CD1分子提呈的糖脂、病毒糖蛋白、分枝杆菌的磷酸糖和核苷酸衍生物、HSP等
分泌多种细胞因子或直接杀伤被感染的细胞
根据表达的辅助受体CD4和CD8分子
CD4在脾脏和淋巴结中更多一些
CD4在接受了抗原之后主要分化为Th细胞
CD8主要分化为CTL
根据其辅助受体的表达和免疫效应功能
Th细胞
Th1
分泌IFN-γ活化巨噬细胞
病理情况下主要参与慢性炎症和自身免疫疾病的发展
Th2
分泌IL-4,5,13
促进B细胞分泌IgE抗体
激活嗜酸性粒细胞、嗜碱性粒细胞、肥大细胞,介导抗寄生虫感染
在过敏反应中有作用
Th17
分泌IL-17,22
募集和活化中性粒细胞
在急性和慢性炎症的发展中有重要作用
Tfh
辅助B细胞的活化
通过直接接触或者分泌细胞因子,从而在B细胞增殖分化、抗体分泌、抗体类型转换中发挥重要作用
CTL
特指由CD8T细胞受到抗原刺激后分化而来的具有细胞毒性的T细胞
可以连续吞噬
Treg细胞
抗原标志:CD25和Foxp3转录因子
主要在免疫反应的负调控和免疫耐受中发挥作用
发挥作用的方式
直接接触抑制
分泌抑制因子
分类
自然调节性T细胞
胸腺中原本就有
适应性调节性T细胞
由初始T细胞受到抗原刺激以后分化产生
主要的生成场所是肠道,在体内与nTreg不容易区分
Tr1
分泌IL-10和TGF-β
抑制自身免疫性疾病,抑制Th1细胞介导的淋巴细胞增殖和移植排斥反应
Th3
主要分泌TGF-β
在黏膜免疫和口服耐受中发挥作用
通过分泌免疫抑制因子发挥作用
T细胞应答
T细胞活化
概述
第一信号:TCR对抗原的识别,对于识别的特异性是必须的,但是不足以引起T细胞的充分活化
第二信号:T细胞表面的多对共刺激分子与APC表面的相互作用,防止自身抗原介导T细胞活化,因为如果是自身的抗原,不能激活APC上调共刺激分子的表达
T细胞特异性识别抗原,启动活化
T细胞与APC之间的非特异性识别
通过T细胞表面的LFA-1和CD2与APC表面的ICAM-1和LFA-3,短暂而可逆的结合
T细胞与APC之间的特异性识别
T细胞识别了抗原肽之后就会使得CD3识别MHC,增强了二者之间的亲和力
上调LFA-1分子对ICAM-1的亲和力,延长作用时间,结合的亲和力增加
免疫突触
在细胞表面的一个特殊区域形成的独特结构,是T细胞与APC之间互作时形成的
是主动的动力学过程
起初,MHC-抗原肽分子和TCR位于免疫突触的周围,随后逐渐移向中间
免疫突触的周围是共刺激分子和黏附分子,增强免疫突触的稳定性,并且促进信号通路的激活
共刺激分子在T细胞活化中的作用
CD28-B7
B7分子就是表达于APC表面的CD80和CD86,这两个单链糖蛋白胞外区都有两个Ig结构域
功能
上调抗凋亡蛋白的表达,比如Bcl家族
IL-2表达上升
稳定mRNA
增加mRNA表达,通过PI3K途径
CTLA-4-B7
诱导性表达于活化的T细胞表面
可竞争性结合B7
抑制免疫活化
胞内区具有ITIM,可直接募集SHP-1和SHIP介导抑制作用
应用
CTLA-4-Ig融合蛋白:抑制自身免疫反应
CTLA-4抗体:激活自身对肿瘤的免疫反应,但需要防范自身免疫
细胞因子促进T细胞增殖和分化
T细胞活化的信号转导途径和靶基因
PLC-γ
目前使用的免疫抑制剂,比如环孢素A和FK506,都是针对该通路中的钙调磷酸酶,使得NFAT不能核转位而发挥作用
ras-MAPK
转录因子NFAT,NF-κB,AP-1
表面标记
CD69
活化早期高表达,与鞘氨醇-1-磷酸盐受体结合并降低其表达,使得T细胞滞留于淋巴器官,不向外周组织迁移
分裂以后低表达,使得T细胞可以向外周组织迁移
CD25
IL-2的受体,使得T细胞可以接受IL-2活化
CD44
是基质透明质酸受体,可使得T细胞可以停留在外周组织
抗原特异性T细胞克隆性增殖和活化
TCR
共刺激分子
自分泌生长因子
IL-2
IL-2R
由CD25,122,132组成,其中,CD25是提高受体亲和性的主要因素
Treg组成性表达CD25,但是自身不分泌IL-2,所以依靠其他T细胞的分泌
如果受到抗原刺激过于强烈,可导致CD25过多游离于血浆,这一点可作为强抗原性刺激的标记,比如急性移植器官排异反应
CD8T细胞分化为CTL
途径
依赖于Th
通常是潜伏病毒感染、肿瘤细胞、器官移植等情况,CD8T细胞活化需要Th细胞提供第二信号
Th细胞分泌IL-2
Th细胞上调CD40L的表达,从而促进共刺激分子的作用,有助于APC给予其更强的刺激
由此可见,HIV感染时,可使得CTL生成缺陷
不依赖于Th
通过交叉呈递途径,或者是APC受到感染,可提供较强的共刺激信号,刺激CD8T细胞产生IL-2,诱导其分化
CD4T细胞分化为多种亚群
最重要因素:细胞因子
首要因素:T细胞活化早期来自固有免疫细胞以及活化T细胞的细胞因子
自我放大:分化成熟以后还可以产生细胞因子
抑制其他种类分化
其他因素:抗原类型、剂量、暴露途径、宿主的基因组成
亚群转化:可塑性
Th1分化
细胞因子:IL-12,IFN-γ
IL-12:来自巨噬细胞和树突细胞,由某些胞内菌、寄生虫刺激产生
IFN-γ:当T细胞向Th1细胞分化以后,可分泌IFN-γ,可以形成正反馈效应,也可以作用于IL-12的产生
转录因子
T-bet
受到TCR和IFN-γ共同诱导
直接激活IFN-γ基因转录
诱导IFN-γ染色质重塑
STAT1
可促进T-bet表达
STAT4
受到IL-12诱导
Th2分化
细胞因子:IL-4
抗原刺激可逐步提高IL-4的浓度
IL-4具有正反馈效应
TCR信号和IL-4共同诱导转录因子GATA-3活化,上调IL-4,5,13的表达
Th17分化
细胞因子:IL-6,IL-23,TGF-β
TGF-β和IL-6:启动分化
IL-23:增殖和维持
分泌的细胞因子:IL-17,IL-22
转录因子:RORγt,STAT3
缺陷了RORγt,可导致一种名为Job's综合征的免疫缺陷病,患者Th17缺乏,多种细菌和真菌感染
效应T细胞的再活化
不需要双信号,只需要TCR的活化
巨噬细胞和B细胞发挥重要作用
T细胞应答的衰减
抗原逐步被清除导致活化的T细胞逐渐死亡
记忆T细胞的形成
参与淋巴细胞再循环
大量存在于黏膜组织、皮肤和淋巴器官中
再次受到抗原刺激时可以不依赖于共刺激分子,迅速被激活
疫苗可诱发记忆性T细胞的产生从而发挥作用
表面标记:IL-7,15的受体,这两种白介素可诱导抗凋亡蛋白的表达,从而维持记忆性T细胞的缓慢增殖
分类
中枢性记忆性T细胞
主要存在于脾、淋巴结、血液中
表达CCR7,高表达CD62L
再次接触抗原以后,主要的应答为增殖活跃,但是效应比较低
完全清除感染主要依靠该种细胞
效应性记忆性T细胞
不表达CCR7,低表达CD62L
再次接触抗原以后,迁移到外周组织,产生效应因子,分化为CTL,但是增殖能力有限