导图社区 生物化学考研-酶促反应动力学与米氏方程
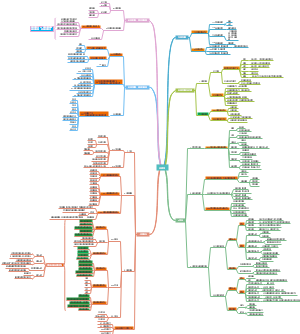
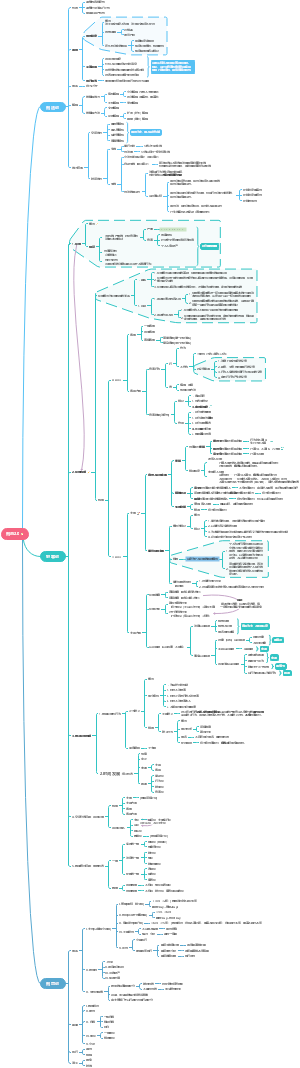
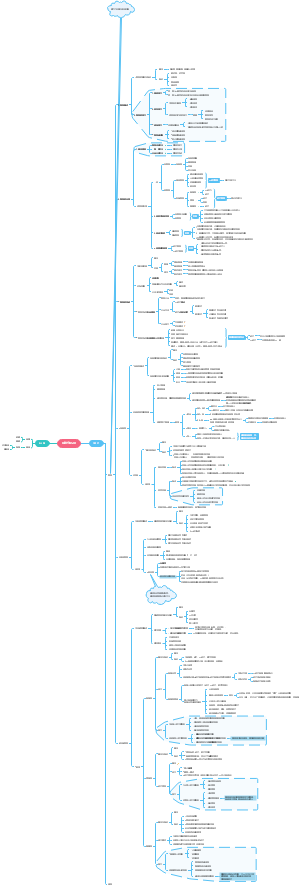
这是一篇关于生物化学考研-酶促反应动力学与米氏方程-易混点对比与答题关键词速查思维导图,底物浓度对反应速度的影响,讲解矩形双曲线特征、反应级数判断和答题要点。米氏方程的推导介绍快速平衡假说与稳态平衡假说,对比两种假说之间的差异,整理答题关键词。米氏方程的形式与讨论展示方程标准形式、极限情况以及实际应用场景。米氏常数 Km 部分阐释它的物理与酶学意义,梳理影响 Km 的因素,区分易混淆概念。最大反应速度 Vmax 讲解其物理意义,辨析它与 kcat 之间的关联。其余板块包含多底物反应机制,介绍有序机制、随机机制、乒乓机制;kcat 与催化效率,解读催化常数与 kcat/Km;双倒数作图法,介绍 Lineweaver‑Burk 方程、截距斜率与实验操作。右侧设置真题速查与答题模板,汇总名词解释、简答、计算题考点和选择题陷阱,适合刷题背诵。无论备考生化研究生的考生,还是正在学习生物化学课程的本科生,都可以借助这份导图理清酶动力学的逻辑框架,突破公式类难点。
提示: 本内容由社区用户上传并分享。平台不对内容的真实性、合法性、知识产权归属及是否侵害第三方权利进行事前审核或保证。本内容可能包含受版权保护的图片、字体或其他第三方素材,使用前请自行确认授权范围。
这是一篇关于生物化学考研-计算公式汇总-易混点对比与答题关键词速查思维导图,计算公式总论介绍公式分类体系和答题关键词,搭建整体学习框架。酶动力学公式板块,汇总米氏方程、米氏常数 Km、Vmax 与 kcat、双倒数作图法、可逆抑制动力学等核心公式,配套速查表,梳理酶相关计算题解题要点。能量代谢计算公式板块,覆盖高能磷酸键换算、葡萄糖彻底氧化、脂肪酸 β- 氧化、糖异生、尿素循环、蛋白质与核酸合成等代谢过程的能量计算公式。分子生物学计算公式板块,包含 DNA 复制、转录、翻译、碱基计算、中心法则、PCR 循环数计算相关公式。酸碱与等电点公式板块,讲解 Henderson-Hasselbalch 方程、氨基酸等电点计算、电荷判断、蛋白质相关换算公式,整理配套答题关键词。导图还设置公式应用速查与易错点板块,归纳常见计算题题型、高频易错点、记忆口诀,提炼答题关键词。真题速查与答题模板板块整理选择题陷阱、计算题模板、判断题速查方法,规避考试常见失分坑。导图将生化繁杂计算公式体系化,集中汇总、区分考点,方便背诵记忆,快速掌握计算类题型解题逻辑。无论课前预习、公式背诵还是考前刷题复盘,生化考研考生都可以借助这份导图系统掌握生化全部计算公式考点。
这是一篇关于生物化学考研-各代谢途径ATP消耗与产出汇总-易混点对比与答题关键词速查思维导图,ATP 计算核心数据板块,整理基础换算、高能磷酸键换算与答题关键词,作为整套计算题的基础依据。糖代谢途径 ATP 汇总板块,包含糖酵解、丙酮酸氧化脱羧、三羧酸循环、磷酸戊糖途径、糖异生、糖原合成与分解、葡萄糖彻底氧化总账等内容,汇总对应途径能量收支。脂代谢途径 ATP 汇总板块,梳理脂肪酸 β- 氧化、软脂酸活化、奇数碳脂肪酸、不饱和脂肪酸、脂肪合成、酮体代谢、胆固醇合成的 ATP 计算要点。氨基酸代谢途径 ATP 汇总板块,覆盖尿素循环、氨基酸活化、生糖与生酮氨基酸相关能量计算。核酸代谢途径 ATP 汇总板块,整理嘌呤核苷酸、嘧啶核苷酸从头合成以及脱氧核苷酸生成过程的能量收支。蛋白质合成途径 ATP 汇总板块,统计氨基酸活化、翻译起始、翻译延伸阶段的能量消耗,计算合成多肽链的总消耗。氧化磷酸化 ATP 汇总板块,围绕呼吸链质子泵出、P/O 比值、胞液 NADH 穿梭机制展开,厘清氧化磷酸化的能量换算逻辑。导图还配套真题速查与答题模板板块,汇总选择题陷阱、名词解释、简答、计算与判断题的解题思路。整张导图把生化能量计算零散知识点整合,标注答题关键词,方便背诵和刷题。无论考点背诵、真题训练还是考前冲刺,生化考研考生都可以借助这份导图系统掌握代谢 ATP 计算的全部考点。
这是一篇关于生物化学考研-生糖生酮氨基酸速查-易混点对比与答题关键词速查思维导图,导图划分多个板块,分别梳理各类氨基酸的代谢入口、生糖或生酮的代谢路径、核心特点、记忆口诀以及答题关键词。分类整理生酮氨基酸、生糖兼生酮氨基酸与生糖氨基酸,逐条列出每种氨基酸的代谢底物、代谢过程,标注代谢能否生成葡萄糖、乙酰 CoA 等关键产物,提炼核心特征与记忆技巧。内容板块分为生理意义、代谢去向、易错点强化。生理意义板块讲解不同营养状态(饥饿、饱食、正常状态)下,氨基酸参与糖、酮体代谢的调节机制,以及氨基酸代谢与糖代谢、脂代谢之间的联系。代谢去向板块梳理氨基酸碳骨架的转化路径,对比丙氨酸与乙酰 CoA 两条代谢分支。易错点强化板块针对易混淆概念做对比辨析,比如亮氨酸与异亮氨酸、生糖与生酮氨基酸的区分,厘清概念差别,规避答题陷阱。导图把生化代谢的零散考点整合,配套答题关键词,方便快速背诵、应对选择题与简答题。无论课前预习、考点背诵还是考前冲刺,生化考研考生都可以借助这份思维导图快速掌握氨基酸糖脂代谢考点。
社区模板帮助中心,点此进入>>
这是一篇关于生物化学考研-计算公式汇总-易混点对比与答题关键词速查思维导图,计算公式总论介绍公式分类体系和答题关键词,搭建整体学习框架。酶动力学公式板块,汇总米氏方程、米氏常数 Km、Vmax 与 kcat、双倒数作图法、可逆抑制动力学等核心公式,配套速查表,梳理酶相关计算题解题要点。能量代谢计算公式板块,覆盖高能磷酸键换算、葡萄糖彻底氧化、脂肪酸 β- 氧化、糖异生、尿素循环、蛋白质与核酸合成等代谢过程的能量计算公式。分子生物学计算公式板块,包含 DNA 复制、转录、翻译、碱基计算、中心法则、PCR 循环数计算相关公式。酸碱与等电点公式板块,讲解 Henderson-Hasselbalch 方程、氨基酸等电点计算、电荷判断、蛋白质相关换算公式,整理配套答题关键词。导图还设置公式应用速查与易错点板块,归纳常见计算题题型、高频易错点、记忆口诀,提炼答题关键词。真题速查与答题模板板块整理选择题陷阱、计算题模板、判断题速查方法,规避考试常见失分坑。导图将生化繁杂计算公式体系化,集中汇总、区分考点,方便背诵记忆,快速掌握计算类题型解题逻辑。无论课前预习、公式背诵还是考前刷题复盘,生化考研考生都可以借助这份导图系统掌握生化全部计算公式考点。
这是一篇关于生物化学考研-各代谢途径ATP消耗与产出汇总-易混点对比与答题关键词速查思维导图,ATP 计算核心数据板块,整理基础换算、高能磷酸键换算与答题关键词,作为整套计算题的基础依据。糖代谢途径 ATP 汇总板块,包含糖酵解、丙酮酸氧化脱羧、三羧酸循环、磷酸戊糖途径、糖异生、糖原合成与分解、葡萄糖彻底氧化总账等内容,汇总对应途径能量收支。脂代谢途径 ATP 汇总板块,梳理脂肪酸 β- 氧化、软脂酸活化、奇数碳脂肪酸、不饱和脂肪酸、脂肪合成、酮体代谢、胆固醇合成的 ATP 计算要点。氨基酸代谢途径 ATP 汇总板块,覆盖尿素循环、氨基酸活化、生糖与生酮氨基酸相关能量计算。核酸代谢途径 ATP 汇总板块,整理嘌呤核苷酸、嘧啶核苷酸从头合成以及脱氧核苷酸生成过程的能量收支。蛋白质合成途径 ATP 汇总板块,统计氨基酸活化、翻译起始、翻译延伸阶段的能量消耗,计算合成多肽链的总消耗。氧化磷酸化 ATP 汇总板块,围绕呼吸链质子泵出、P/O 比值、胞液 NADH 穿梭机制展开,厘清氧化磷酸化的能量换算逻辑。导图还配套真题速查与答题模板板块,汇总选择题陷阱、名词解释、简答、计算与判断题的解题思路。整张导图把生化能量计算零散知识点整合,标注答题关键词,方便背诵和刷题。无论考点背诵、真题训练还是考前冲刺,生化考研考生都可以借助这份导图系统掌握代谢 ATP 计算的全部考点。
这是一篇关于生物化学考研-生糖生酮氨基酸速查-易混点对比与答题关键词速查思维导图,导图划分多个板块,分别梳理各类氨基酸的代谢入口、生糖或生酮的代谢路径、核心特点、记忆口诀以及答题关键词。分类整理生酮氨基酸、生糖兼生酮氨基酸与生糖氨基酸,逐条列出每种氨基酸的代谢底物、代谢过程,标注代谢能否生成葡萄糖、乙酰 CoA 等关键产物,提炼核心特征与记忆技巧。内容板块分为生理意义、代谢去向、易错点强化。生理意义板块讲解不同营养状态(饥饿、饱食、正常状态)下,氨基酸参与糖、酮体代谢的调节机制,以及氨基酸代谢与糖代谢、脂代谢之间的联系。代谢去向板块梳理氨基酸碳骨架的转化路径,对比丙氨酸与乙酰 CoA 两条代谢分支。易错点强化板块针对易混淆概念做对比辨析,比如亮氨酸与异亮氨酸、生糖与生酮氨基酸的区分,厘清概念差别,规避答题陷阱。导图把生化代谢的零散考点整合,配套答题关键词,方便快速背诵、应对选择题与简答题。无论课前预习、考点背诵还是考前冲刺,生化考研考生都可以借助这份思维导图快速掌握氨基酸糖脂代谢考点。
生物化学考研-酶促反应动力学与米氏方程-易混点对比与答题关键词速查
底物浓度对反应速度的影响
矩形双曲线
底物浓度很低时
反应速度随底物浓度增加而急骤加快
两者呈正比关系
表现为一级反应
底物浓度升高后
反应速度不再呈正比例加快
增加幅度不断下降
表现为混合级反应
底物浓度继续加大
反应速度不再增加
趋于恒定值
表现为零级反应
酶被底物饱和
整体曲线
呈矩形双曲线
饱和时速度趋近Vmax
反应级数判断
[S]远小于Km
一级反应
v与[S]成正比
[S]处于中间范围
混合级反应
[S]远大于Km
零级反应
v与[S]无关
v趋近Vmax
答题关键词
简答题常见问法
底物浓度对酶促反应速度的影响
为什么底物浓度过高时反应速度不再增加
选择题高频点
矩形双曲线
低浓度一级反应,高浓度零级反应
米氏方程的推导
反应模型
E + S ⇌ ES → E + P
k1:E与S结合形成ES
k-1:ES解离为E与S
k2:ES分解为E与P
核心假设
底物浓度远大于酶浓度
[S]可认为不变
研究初速度,P量极小
忽略P→ES逆反应
酶守恒:[E]+[ES]=[E0]
快速平衡假说
由Michaelis和Menten提出
假设ES分解为产物的速度极慢
不影响E与ES之间的快速平衡
推导得:v=Vmax[S]/(Ks+[S])
Ks为ES解离常数
稳态平衡假说
由Briggs和Haldane提出
[ES]生成与分解处于动态平衡
需考虑ES分解为P的影响
ES生成速度:k1([E]-[ES])[S]
ES分解速度:k-1[ES]+k2[ES]
两者相等
推导得:v=Vmax[S]/(Km+[S])
Km=(k-1+k2)/k1
两种假说的区别
快速平衡:Km≈Ks,需k-1远大于k2
稳态平衡:Km=(k-1+k2)/k1,更通用
当k2极小时,稳态平衡约等于快速平衡
两者方程形式相同
区别仅在于常数含义
答题关键词
名词解释
米氏方程:表示酶促反应起始速度与底物浓度关系的速度方程
米氏常数:酶促反应速度达最大速度一半时的底物浓度
简答题常见问法
推导米氏方程
快速平衡假说与稳态平衡假说的区别
选择题高频点
Km=(k-1+k2)/k1
稳态平衡假说比快速平衡更通用
米氏方程的形式与讨论
标准形式
v=Vmax[S]/(Km+[S])
v为反应初速度
Vmax为最大反应速度
[S]为底物浓度
Km为米氏常数
极限情况
[S]远小于Km时
v≈Vmax[S]/Km
一级反应
[S]远大于Km时
v≈Vmax
零级反应
[S]=Km时
v=Vmax/2
Km的物理意义
米氏方程的应用
已知Km和Vmax
可确定任意[S]下的v
已知v和Vmax
可计算[S]与Km的倍数关系
可推知酶活性中心被底物饱和的分数
可计算工具酶用量
答题关键词
选择题高频点
[S]=Km时v=Vmax/2
米氏方程只适用于初速度
米氏常数Km的物理意义
物理意义
定义
酶促反应速度达最大速度一半时的底物浓度
即v=Vmax/2时[S]=Km
单位
mol/L
与底物浓度单位相同
数值范围
一般为10^-6~10^-2 mol/L
酶学意义
特征性常数
只与酶的性质有关
与酶浓度无关
可用于鉴别不同的酶
表示酶对底物的亲和力
1/Km可近似表示亲和力大小
Km越小,亲和力越大
Km越大,亲和力越小
最适底物判断
一个酶有几种底物时
Km最小的底物为最适底物或天然底物
判断限速步骤
一组连续代谢反应中
Km最大的酶所催化的反应为限速步骤
判断反应方向
测定正逆两方向底物的Km
可推测体内催化反应方向
影响Km的因素
酶的性质
不同酶Km不同
底物种类
同一酶对不同底物Km不同
环境条件
pH、温度、离子强度
可影响Km值
易混对比
Km vs Ks
Km:米氏常数,稳态平衡推导,Km=(k-1+k2)/k1
Ks:ES解离常数,快速平衡推导,Ks=k-1/k1
k2极小时Km≈Ks
Km vs Vmax
Km:底物浓度单位,与酶浓度无关,表示亲和力
Vmax:速度单位,与酶浓度成正比,表示最大能力
两者含义完全不同
1/Km vs kcat/Km
1/Km:近似表示亲和力
kcat/Km:催化效率,综合考虑结合和催化
kcat/Km更全面
答题关键词
名词解释
米氏常数Km:酶促反应速度达最大速度一半时的底物浓度,是酶的特征性常数,与酶浓度无关
简答题常见问法
Km的物理意义和酶学意义
Km与Ks的区别
选择题高频点
Km与酶浓度无关
Km越小亲和力越大
Km最小的是最适底物
Km最大的是限速酶
最大反应速度Vmax
物理意义
定义
一定酶量下酶完全被底物饱和时的反应速度
底物浓度极大时v趋近Vmax
与酶浓度的关系
Vmax与酶浓度成正比
即Vmax=kcat[E0]
特点
酶浓度不变时,对特定底物Vmax为常数
酶浓度改变时Vmax随之改变
与kcat的关系
kcat=Vmax/[E]total
kcat称为催化常数或转换数
单位:s^-1
表示单位时间内每个酶分子将底物转化为产物的最大分子数
kcat越大,催化效率越高
多数酶kcat在1~10^4 s^-1
易混对比
Vmax vs kcat
Vmax:速度单位,与酶浓度有关
kcat:速率常数,单位s^-1,与酶浓度无关
Vmax=kcat[E]total
Vmax vs 反应速度v
Vmax:酶被底物饱和时的最大速度
v:任意底物浓度下的实际速度
v≤Vmax
答题关键词
名词解释
最大反应速度Vmax:酶完全被底物饱和时的反应速度,与酶浓度成正比
选择题高频点
Vmax与酶浓度成正比
kcat=Vmax/[E]total
kcat是速率常数
双倒数作图法
Lineweaver-Burk方程
取米氏方程倒数
1/v=Km/(Vmax[S])+1/Vmax
整理为斜截式
y=kx+b
1/v=Km/Vmax×1/[S]+1/Vmax
以1/v对1/[S]作图
得到一条直线
截距与斜率
纵轴截距
1/Vmax
横轴截距
-1/Km
斜率
Km/Vmax
实验操作
选择不同[S]测定相应v
求出两者倒数
以1/v对1/[S]作图
利用截距和斜率求Km和Vmax
优点:直线作图,直观准确
其他作图法
Hanes作图
[S]/v对[S]作图
Eadie-Hofstee作图
v对v/[S]作图
Woolf作图
双倒数法的变体
易混对比
双倒数作图 vs 直接作图
直接作图:v对[S],矩形双曲线,难精确读取
双倒数作图:1/v对1/[S],直线,易精确读取
双倒数法更常用
双倒数作图 vs Hanes作图
双倒数:1/v对1/[S],横截距-1/Km
Hanes:[S]/v对[S],横截距-Km
两者均可求Km和Vmax
纵轴截距 vs 横轴截距
纵轴截距:1/Vmax
横轴截距:-1/Km
注意负号,高频陷阱
答题关键词
名词解释
双倒数作图法:以1/v对1/[S]作图求Km和Vmax的方法
Lineweaver-Burk方程:米氏方程的倒数形式,1/v=Km/(Vmax[S])+1/Vmax
简答题常见问法
双倒数作图法求Km和Vmax的原理
为什么用双倒数作图而不是直接作图
选择题高频点
纵轴截距为1/Vmax
横轴截距为-1/Km
斜率为Km/Vmax
计算题速查
纵轴截距=1/Vmax→Vmax=1/纵轴截距
横轴截距=-1/Km→Km=-1/横轴截距
斜率=Km/Vmax
kcat与催化效率
催化常数kcat
定义
每个酶活性位点在单位时间内转化底物的分子数
又称转换数
单位:s^-1
计算公式
Vmax=kcat[E]total
kcat=Vmax/[E]total
意义
衡量酶催化快慢
kcat越大催化效率越高
典型数值
多数酶:1~10^4 s^-1
碳酸酐酶:约10^6 s^-1
催化效率kcat/Km
定义
二级常数
又称专一性常数
单位:M^-1s^-1
物理意义
综合考虑底物结合和催化转化
生理条件下[S]远小于Km时
v=(kcat/Km)[E][S]
此时反应为一级反应
数值范围
扩散限制上限:10^8~10^9 M^-1s^-1
达到此上限的酶称为催化完美酶
磷酸丙糖异构酶为典型
应用
比较不同酶对同一底物的催化效率
比较同一酶对不同底物的专一性
kcat/Km最大的底物为最适底物
易混对比
kcat vs kcat/Km
kcat:单底物饱和时转化数,只反映催化步骤
kcat/Km:生理条件下综合效率,反映结合+催化
kcat/Km更全面
kcat/Km vs 1/Km
kcat/Km:催化效率,综合考虑
1/Km:亲和力近似值,只反映结合
kcat/Km更有意义
催化完美酶 vs 普通酶
催化完美酶:kcat/Km达扩散限制10^8-10^9
普通酶:kcat/Km远低于此值
磷酸丙糖异构酶是催化完美酶
答题关键词
名词解释
kcat:每个酶活性位点在单位时间内转化底物的分子数,即转换数
催化效率:kcat/Km,综合考虑底物结合和催化转化的二级常数
催化完美酶:kcat/Km达扩散限制10^8-10^9 M^-1s^-1的酶
简答题常见问法
kcat与kcat/Km的区别
为什么kcat/Km比1/Km更能反映酶效率
什么是催化完美酶
选择题高频点
kcat单位是s^-1
kcat/Km上限是扩散限制
磷酸丙糖异构酶是催化完美酶
kcat/Km最大的是最适底物
多底物反应机制
双底物反应分类
依次机制
有序机制
随机机制
乒乓机制
非依次机制
有序机制
底物按一定顺序结合
产物按一定顺序释放
形成三元复合物EAB
双倒数图:相交直线
例:脱氢酶类
随机机制
底物随机结合
产物随机释放
形成三元复合物
双倒数图:相交直线
例:激酶类
乒乓机制
底物A结合后释放产物P
酶变为修饰形式E'
底物B结合后释放产物Q
酶恢复原形
不形成三元复合物
双倒数图:平行直线
例:转氨酶类
易混对比
有序机制 vs 随机机制
有序:底物结合有顺序,产物释放有顺序
随机:底物结合和产物释放均随机
双倒数图均相交,难以区分
乒乓机制 vs 依次机制
乒乓:平行直线,无三元复合物
依次:相交直线,有三元复合物
双倒数图是核心区分方法
乒乓机制 vs 有序机制
乒乓:修饰酶中间体,平行线
有序:三元复合物,相交线
答题关键词
名词解释
乒乓机制:底物A结合后释放产物P,酶变为修饰形式,再结合底物B释放产物Q并恢复原形的机制
有序机制:底物按一定顺序结合、产物按一定顺序释放的机制
简答题常见问法
多底物反应机制的分类
如何通过双倒数图区分乒乓机制和依次机制
选择题高频点
乒乓机制双倒数图为平行线
依次机制双倒数图为相交线
乒乓机制无三元复合物
真题速查与答题模板
选择题高频陷阱
Km是酶的特征性常数,与酶浓度无关
Km越小,酶对底物亲和力越大
Km最小的是最适底物
Km最大的是限速酶
[S]=Km时v=Vmax/2
双倒数图纵轴截距1/Vmax,横轴截距-1/Km
kcat单位是s^-1,kcat/Km单位是M^-1s^-1
kcat/Km上限为扩散限制
磷酸丙糖异构酶是催化完美酶
乒乓机制双倒数图为平行线
快速平衡Km≈Ks,稳态平衡Km=(k-1+k2)/k1
名词解释速答模板
米氏方程
表示酶促反应起始速度与底物浓度关系的速度方程
v=Vmax[S]/(Km+[S])
1913年Michaelis和Menten提出
米氏常数Km
酶促反应速度达最大速度一半时的底物浓度
是酶的特征性常数,与酶浓度无关
1/Km近似表示酶对底物的亲和力
最大反应速度Vmax
酶完全被底物饱和时的反应速度
与酶浓度成正比
Vmax=kcat[E]total
双倒数作图法
以1/v对1/[S]作图
纵轴截距1/Vmax,横轴截距-1/Km
用于求Km和Vmax
kcat
每个酶活性位点在单位时间内转化底物的分子数
又称转换数,单位s^-1
kcat=Vmax/[E]total
催化效率
kcat/Km,二级常数
综合考虑底物结合和催化转化
上限为扩散限制10^8-10^9 M^-1s^-1
乒乓机制
底物A结合后释放产物P
酶变为修饰形式
底物B结合后释放产物Q
酶恢复原形
双倒数图为平行线
简答题答题框架
Km的物理意义和酶学意义
物理意义:v=Vmax/2时的底物浓度
特征性常数:只与酶性质有关,与酶浓度无关
表示亲和力:1/Km近似表示,Km越小亲和力越大
判断最适底物:Km最小者为最适底物
判断限速步骤:Km最大者为限速酶
鉴别不同酶:不同酶Km不同
推导米氏方程
反应模型:E+S⇌ES→E+P
稳态平衡假说:[ES]生成与分解处于动态平衡
ES生成速度:k1([E]-[ES])[S]
ES分解速度:k-1[ES]+k2[ES]
两者相等,解出[ES]
v=k2[ES],代入得米氏方程
Km=(k-1+k2)/k1
kcat与kcat/Km的区别
kcat:转换数,单位s^-1,只反映催化步骤
kcat/Km:催化效率,单位M^-1s^-1,综合考虑结合和催化
生理条件下[S]远小于Km时v=(kcat/Km)[E][S]
kcat/Km上限为扩散限制
达上限者为催化完美酶
多底物反应机制分类
依次机制:有序机制、随机机制
乒乓机制:非依次机制
有序:底物和产物按一定顺序,相交线
随机:底物和产物随机,相交线
乒乓:修饰酶中间体,平行线
计算题速查
由双倒数图求Km和Vmax
纵轴截距=1/Vmax→Vmax=1/纵轴截距
横轴截距=-1/Km→Km=-1/横轴截距
斜率=Km/Vmax
由Km和Vmax求v
v=Vmax[S]/(Km+[S])
由v和Vmax求[S]
[S]=Km×v/(Vmax-v)
求kcat
kcat=Vmax/[E]total
求催化效率
kcat/Km
求酶活性中心饱和分数
饱和分数=v/Vmax=[S]/(Km+[S])