导图社区 生物化学
- 13
- 0
- 0
- 举报
生物化学
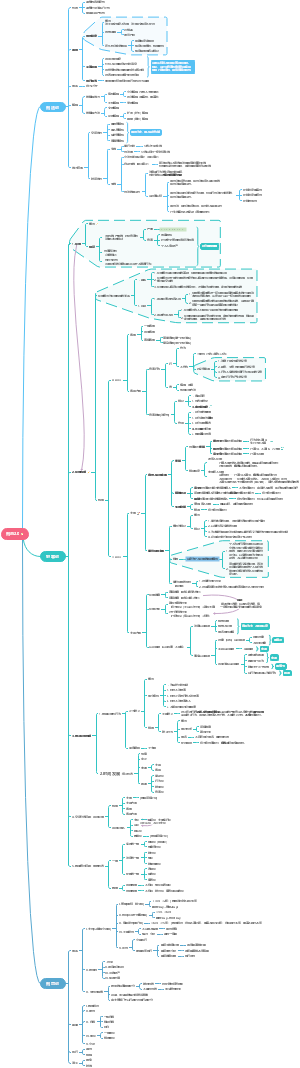
这是一篇关于生物化学思维导图,糖的构型与旋光性并不必然一致,D 型糖不一定是右旋糖,L 型糖也不一定是左旋糖,二者判定依据完全不同:D/L 构型以距离羰基最远的手性碳原子上羟基相对位置划分,属于相对构型标记;右旋、左旋是偏振光偏转方向,为实测物理性质,葡萄糖只是特例,D - 葡萄糖为右旋,L - 葡萄糖为左旋,自然界中天然葡萄糖均为 D-Glc。本简介围绕生物化学核心内容展开,覆盖两大主干板块,包含物质代谢与生物能学、生物分子结构与功能,细分核酸与核苷酸代谢、氨基酸与蛋白质代谢、脂质代谢、多条糖代谢途径、氧化磷酸化、柠檬酸循环等重点通路,同时包含酶学、维生素与辅酶等基础模块。内容不仅梳理基础生化的经典考点,解析各类生物大分子结构特点、代谢反应流程、关键酶调控机制与能量转换规律,还融入前沿拓展内容,介绍端粒 G 四链体与 i-motif 结构对细胞衰老的调控影响,以及磷脂酰胆碱 PC 在甘油磷脂体系中的乳化作用。适合生化用于课程复习、考点梳理与拓展阅读。
提示: 本内容由社区用户上传并分享。平台不对内容的真实性、合法性、知识产权归属及是否侵害第三方权利进行事前审核或保证。本内容可能包含受版权保护的图片、字体或其他第三方素材,使用前请自行确认授权范围。
- 医学
- 生物化学
- 生物学
- 物质代谢
- 遗传学
该思维导图涵盖从经典遗传到分子遗传的核心模块。孟德尔遗传的拓展部分介绍了等位基因、表型与基因型概念,以及不完全显性、共显性、复等位基因等非孟德尔遗传现象;数量性状遗传阐述了多基因假说、遗传率及近交与杂种优势;基因概念的发展从经典概念延伸至顺反子、重叠基因、跳跃基因及RNA编辑;连锁与交换解析了基因连锁、互换率计算及三点测交等作图方法。此外,还系统介绍了遗传与演化(群体遗传学与演化机制)、遗传分析方法(模式生物、系谱分析等)、表观遗传调控(DNA甲基化、组蛋白修饰、X染色体失活)以及基因表达调控与基因组学(人类基因组计划、基因组测序与分析)。适用于生命科学及医学专业学生复习备考、科研人员查阅遗传学核心概念,以及生物学教师备课参考。
- 生物化学
这是一篇关于生物化学思维导图,糖的构型与旋光性并不必然一致,D 型糖不一定是右旋糖,L 型糖也不一定是左旋糖,二者判定依据完全不同:D/L 构型以距离羰基最远的手性碳原子上羟基相对位置划分,属于相对构型标记;右旋、左旋是偏振光偏转方向,为实测物理性质,葡萄糖只是特例,D - 葡萄糖为右旋,L - 葡萄糖为左旋,自然界中天然葡萄糖均为 D-Glc。本简介围绕生物化学核心内容展开,覆盖两大主干板块,包含物质代谢与生物能学、生物分子结构与功能,细分核酸与核苷酸代谢、氨基酸与蛋白质代谢、脂质代谢、多条糖代谢途径、氧化磷酸化、柠檬酸循环等重点通路,同时包含酶学、维生素与辅酶等基础模块。内容不仅梳理基础生化的经典考点,解析各类生物大分子结构特点、代谢反应流程、关键酶调控机制与能量转换规律,还融入前沿拓展内容,介绍端粒 G 四链体与 i-motif 结构对细胞衰老的调控影响,以及磷脂酰胆碱 PC 在甘油磷脂体系中的乳化作用。适合生化用于课程复习、考点梳理与拓展阅读。
- 光学
该思维导图分为光学导论、光的衍射与干涉两大板块。光学导论梳理光的本性相关学说,包含微粒说、波动说、光量子说,同时划分几何光学、波动光学、量子光学三大分支;介绍光强定义、简谐波复数表示、费马原理等基础概念,讲解光程与光程差的计算规则,铺垫波动光学基础。光的衍射与干涉板块先讲解波的叠加原理、相干条件,再展开干涉内容,涵盖杨氏双缝干涉、薄膜干涉、迈克耳孙干涉仪,阐释分光原理、条纹计算与相位差规律;衍射部分介绍衍射现象、菲涅耳衍射与夫琅禾费衍射,重点梳理单缝衍射、圆孔衍射、多缝衍射、光栅衍射,罗列明暗纹条件、艾里斑特点、光栅色散等核心公式与结论,区分各类衍射图样特征,串联起波动光学核心重难点,方便梳理逻辑、记忆公式。
生物化学
社区模板帮助中心,点此进入>>
- 遗传学
该思维导图涵盖从经典遗传到分子遗传的核心模块。孟德尔遗传的拓展部分介绍了等位基因、表型与基因型概念,以及不完全显性、共显性、复等位基因等非孟德尔遗传现象;数量性状遗传阐述了多基因假说、遗传率及近交与杂种优势;基因概念的发展从经典概念延伸至顺反子、重叠基因、跳跃基因及RNA编辑;连锁与交换解析了基因连锁、互换率计算及三点测交等作图方法。此外,还系统介绍了遗传与演化(群体遗传学与演化机制)、遗传分析方法(模式生物、系谱分析等)、表观遗传调控(DNA甲基化、组蛋白修饰、X染色体失活)以及基因表达调控与基因组学(人类基因组计划、基因组测序与分析)。适用于生命科学及医学专业学生复习备考、科研人员查阅遗传学核心概念,以及生物学教师备课参考。
- 生物化学
这是一篇关于生物化学思维导图,糖的构型与旋光性并不必然一致,D 型糖不一定是右旋糖,L 型糖也不一定是左旋糖,二者判定依据完全不同:D/L 构型以距离羰基最远的手性碳原子上羟基相对位置划分,属于相对构型标记;右旋、左旋是偏振光偏转方向,为实测物理性质,葡萄糖只是特例,D - 葡萄糖为右旋,L - 葡萄糖为左旋,自然界中天然葡萄糖均为 D-Glc。本简介围绕生物化学核心内容展开,覆盖两大主干板块,包含物质代谢与生物能学、生物分子结构与功能,细分核酸与核苷酸代谢、氨基酸与蛋白质代谢、脂质代谢、多条糖代谢途径、氧化磷酸化、柠檬酸循环等重点通路,同时包含酶学、维生素与辅酶等基础模块。内容不仅梳理基础生化的经典考点,解析各类生物大分子结构特点、代谢反应流程、关键酶调控机制与能量转换规律,还融入前沿拓展内容,介绍端粒 G 四链体与 i-motif 结构对细胞衰老的调控影响,以及磷脂酰胆碱 PC 在甘油磷脂体系中的乳化作用。适合生化用于课程复习、考点梳理与拓展阅读。
- 光学
该思维导图分为光学导论、光的衍射与干涉两大板块。光学导论梳理光的本性相关学说,包含微粒说、波动说、光量子说,同时划分几何光学、波动光学、量子光学三大分支;介绍光强定义、简谐波复数表示、费马原理等基础概念,讲解光程与光程差的计算规则,铺垫波动光学基础。光的衍射与干涉板块先讲解波的叠加原理、相干条件,再展开干涉内容,涵盖杨氏双缝干涉、薄膜干涉、迈克耳孙干涉仪,阐释分光原理、条纹计算与相位差规律;衍射部分介绍衍射现象、菲涅耳衍射与夫琅禾费衍射,重点梳理单缝衍射、圆孔衍射、多缝衍射、光栅衍射,罗列明暗纹条件、艾里斑特点、光栅色散等核心公式与结论,区分各类衍射图样特征,串联起波动光学核心重难点,方便梳理逻辑、记忆公式。
- 相似推荐
- 大纲
生物化学
生物分子的结构与功能
氨基酸、肽和蛋白质
氨基酸
常用氨基酸缩写;Cys=cysteine,胱氨酸=cystine
人体有9种必需氨基酸:组氨酸His、异亮氨酸Ile、亮氨酸Leu、赖氨酸Lys、甲 硫氨酸Met、苯丙氨酸Phe、苏氨酸Thr、色氨酸Trp、缬氨酸Val。自身合成不能 满足需要,须由膳食提供。
条件必需氨基酸:如精氨酸、半胱氨酸、酪氨酸等,在生长发育或某些疾病状态 下,自身合成可能不足。组氨酸属于成人及儿童的必需氨基酸。
分类
非极性基团氨基酸:
Gly, Ala, Val, Leu, Ile, Met
芳香族基团氨基酸:
Phe, Tyr, Trp
极性不带电基团氨基酸:
Ser, Thr, Cys, Asn, Gln, Pro
极性带正电基团氨基酸:
Lys, His, Arg
极性带负电基团氨基酸:
Asp, Glu
一些补充
甲硫氨酸的别名蛋氨酸,本意是卵白蛋白中含该氨基酸量多
S-腺苷甲硫氨酸是重要的甲基供体
胱氨酸和半胱氨酸
蛋白质280 nm吸收主要来自Trp和Tyr;Phe的主要吸收峰在更短波长,贡献较弱。
含羟基脂肪族氨基酸是重要的蛋白质磷酸化位点
脯氨酸易溶于水;植物受到干旱、盐渍等胁迫时,游离脯氨酸常积累,参与渗透 调节及细胞保护。
不常见的一级氨基酸
硒代半胱氨酸(密码子:UGA)
比Cys具有更高的反应活性,常出现在抗氧化酶如谷胱甘肽过氧化物酶中
吡咯赖氨酸(密码子:UAG)
在产甲烷菌中含有特异的吡咯赖氨酰-tRNA合成酶(PylRS)和吡咯赖氨酸tRNA(tRNAPyl),tRNAPyl具有不同于经典tRNA的特殊结构
氨基酸作为治疗药剂
Arg参与尿素循环,并是合成一氧化氮的底物;特定尿素循环缺陷的治疗需依据 具体酶缺陷。
Asp参与转氨反应、尿素循环和核苷酸合成;这些生化作用不能直接推导出其盐 类能治疗多种疾病。
Cys的巯基参与氧化还原与二硫键形成,也是谷胱甘肽的组成成分;须区分Cys本 身与其药物衍生物的用途。
His的咪唑基可参与酸碱催化和金属配位。His经脱羧生成组胺,后者参与过敏反 应、胃酸分泌及神经信号。
氨基酸在食品工业
味精:谷氨酸单钠盐
天冬氨酸钠:清凉饮料
天冬氨酰苯丙氨酸甲酯:甜味素(APM)
氨基酸在农业:杀虫剂,杀菌剂,除草剂
其他氨基酸的结构
出现在蛋白质上的氨基酸修饰翻译后修饰(PTM)
4-羟脯氨酸大量出现于胶原蛋白
5-羟赖氨酸大量出现于结缔组织
Lysine侧链氨基的甲基化,与表观遗传有关
磷酸化修饰与众多信号通路有关,首要发生在丝苏酪氨酸
焦谷氨酸(5-氧代脯氨酸):谷氨酸或谷氨酰胺环化形成的衍生物,可出现在某 些蛋白质的N端。
游离型氨基酸衍生物
鸟氨酸:存在于Arg生物合成
瓜氨酸:存在于尿素循环
色氨酸衍生物:5-羟色氨酸是血清素(serotonin,又名5-羟色胺,5-HT)和褪黑素(melatonin)的前体
高丝氨酸(homoserine)比丝氨酸多一个亚甲基,是植物和微生物合成某些氨基 酸的中间产物。
酪氨酸衍生物
氨基酸衍生物:GABA来自谷氨酸;肉碱的合成涉及赖氨酸及甲硫氨酸提供的甲基。
氨基酸的理化性质
氨基酸的一般物理性质
无色晶体,熔点较高(200-300°C),水中溶解度各不同,取决于侧链
Trp、Tyr和Phe有紫外吸收;蛋白质在280 nm处的吸收主要来自Trp和Tyr,Phe贡 献很小。定量时需考虑蛋白质的消光系数及核酸等干扰。
关于分子量:20种氨基酸的平均分子量为138,较小的氨基酸在多数蛋白质中的丰度高,如果考虑不同氨基酸在蛋白质中出现的比例平均分子量只有128,形成肽键时失去一分子水,因此,蛋白质分子中氨基酸残基的平均分子量为128-18=110
两性电解质:同一个氨基酸分子上可以同时携带正电荷和负电荷,称为两性电解质ampholyte
等电点的计算:
等电点取夹住净电荷为零形态的两个pKa的平均值。酸性侧链常涉及两个羧基; 碱性侧链须根据具体基团判断,例如His为咪唑基,Arg为胍基,并非都叫侧链氨 基。
氨基酸的化学性质(测序相关反应具体见下)
α-氨基的反应
茚三酮
所有氨基酸及具有游离α-氨基的肽与茚三酮反应都产生蓝紫色物质,只有脯氨酸和羟脯氨酸与茚三酮反应产生黄色物质(此二者是亚氨基)
方程式:
特点:只需要有一个α-氨基就可以参加反应,和侧链无关,氨基酸、多肽、蛋白质都可以反应,无法区分
荧光胺-Fluorescamine
van Slyke定氮,范斯莱克法
范斯莱克法定量测定氨基酸的基本反应,标准条件下测定生成氮气的体积,可计算氨基酸的量,用于氨基酸定量和蛋白质水解程度的测定
注意:生成的N₂只有一半来自氨基酸
羟甲基化反应
可以用来滴定氨基酸的浓度
酰基化反应(氨基保护反应)
α-羧基的反应
Strecker降解反应
α-氨基酸与α-二羰基化合物反应时,α-氨基酸氧化脱羧生成比原来氨基酸少一个碳原子的醛,氨基与二羰基化合物结合并缩合成吡嗪;此外,还可降解生成较小分子的双乙酰、乙酸、丙酮醛等
美拉德反应:不同α-氨基酸与还原糖加热能按Strecker降解生成各种特殊醛类,不仅与褐变有关,还与香气的产生有关。例如,亮氨酸与葡萄糖在高温下反应,能够产生令人愉悦的面包香~红烧肉
氨基酸的旋光性和光谱性质
旋光性
核糖体合成蛋白质通常采用L-氨基酸;甘氨酸无手性。D-氨基酸可见于细菌细胞 壁及某些非核糖体肽等。
氨基酸混合物的分析和分离
色谱法/层析法(Chromatography):使混合物中各组分在两相间进行分配,其中 一相是不动的(固定相),另一相(流动相)携带混合物流过此固定相,与固定相发 生作用,在同推动力下,不同组分在固定相中滞留的时间不同,依次从固定相中 流出,又称色层法,层析法
滤纸层析(Filter-paper chromatography)
分配层析的一种,滤纸纤维素上吸附的水是固定相,展层(development)用的溶剂是流动相,层析使混合氨基酸在两相中不断被分配,使它们分配在滤纸的不同位置
滤纸层析是分离及鉴定简单氨基酸混合物的常用技术,可用于蛋白质氨基酸组成的定性鉴定及定量测定
溶剂从原点渗透到距离a(一般在20-30厘米时测定)的时候,如果位于原点的物质从原点向前移动到b,那么b/a的值(0.0-1.0)就是这种物质的Rf值(比移值)
离子交换柱层析(Ion-exchange column chromatography)
此法是利用离子交换载体作为柱层析支持物,将带有不同电荷及电量的氨基酸进行分离的方法
离子交换柱可以分为阳离子交换柱(如羧甲基纤维素等)和阴离子交换柱(如二乙基氨基乙基纤维素DEAE-纤维素等)——阳离子交换柱~交换阳离子~吸附阳离子~树脂带负电
阳离子交换层析中,带正电荷多的AA与树脂结合较强,而带正电荷少的AA与树脂结合则较弱。用不同浓度的阳离子洗脱液,如NaCl溶液进行梯度洗脱,通过Na的离子交换作用,可以将带有不同正电荷的氨基酸进行分离。也可以用不同pH值的缓冲液洗脱。
气相色谱(Gas liquid chromatography,GLC)
高效液相色谱(high-performance liquid chromatography,HPLC)
固相支持物的颗粒很细,表面积很大;溶剂系统采取高压,洗脱速快
肽:氨基酸残基主要通过肽键(peptide bond)连接形成的链状分子。
注意多肽不仅仅是核糖体上合成出来的,还有通过酶促反应连起来的
后者的一个例子:glutathione(谷胱甘肽)
GSH作用:在红细胞中作为巯基缓冲剂存在,维持血红蛋白和其它红细胞蛋白质 的半胱氨酸残基处于还原状态,可防止H2O2将红细胞中血色素的二价铁氧化成三 价铁形成高铁血红蛋白
肽的物理化学性质
双缩脲反应:与硫酸铜-氢氧化钠溶液产生紫红色或蓝紫色络合物反应,可用于肽和蛋白质定量测定
蛋白有而氨基酸没有的反应
二肽不能反应
一级结构
Anfinsen通过用尿素和β‑巯基乙醇使RNase A完全变性,然后仅在去除变性剂后蛋白自发恢复活性及正确二硫键,证明了其三级结构完全由氨基酸一级序列决定
蛋白质
蛋白质的组成、分类、分子大小和结构层次
蛋白质含量约等于N含量*6.25
根据是不是只有氨基酸残基(有没有辅基)分为单纯蛋白质和复合蛋白质
蛋白质一级结构测定的步骤
蛋白质的分离纯化(Purification)
二硫键的拆分与保护(S-S cleavage & blocking)
Edman中不能形成稳定的PTH-AA
多链蛋白通常需先分离肽链,再分别进行N端分析或测序;N端封闭会限制常规 Edman降解。
方法
过甲酸:不可逆
二硫键可先用β-巯基乙醇或二硫苏糖醇(DTT)还原,再用碘乙酸等烷基化巯基, 防止二硫键重新形成。
亚硫酸分解:可逆
亚基分离(Subunit separation)
用8mol/L尿素或6mol/L盐酸胍处理
具有形成氢键的能力,成为非极性残基的较好溶剂
多种方法的部分水解(Partial hydrolysis)
蛋白质的酸水解
常用6 mol/L 盐酸或4 mol/L 硫酸在105-110°C条件下进行水解,反应时间约20小时
优点是不容易引起水解产物的消旋化。缺点是色氨酸被沸酸完全破坏
含有羟基的氨基酸如丝氨酸或苏氨酸有一小部分被分解;天冬酰胺和谷氨酰胺侧 链的酰胺基被水解成羧基
蛋白质的碱水解
一般用 5 mol/L 氢氧化钠煮沸10-20小时
由于水解过程中许多氨基酸都受到不同程度的破坏,产率不高
部分的水解产物发生消旋化
该法的优点是色氨酸在水解中不受破坏
肽键的专一性水解(化学法)
溴化氰(CNBr)与肽链中Met侧链的硫醚基发生反应,生成环化的溴化亚氨内酯,此产物水解后,产生高丝氨酸内酯,使Met羧基端的肽键断裂。这一方法的优点是产率高(可达85%)、专一性强,故实际应用较多
羟胺(NH2OH)在碱性条件下(pH 9.0)能专一性裂解-Asn-Gly-间的肽键,也能部分裂解-Asn-Leu-或-Asn-Ala-间的肽键;在酸性条件可以断裂-Asp-Pro-间的肽键,产率可达80%
肽键的专一性水解(酶法)
胰蛋白酶(Trypsin)
胰凝乳蛋白酶(chymotrypsin)
胃蛋白酶(pepsin)
分离水解后得到的多肽(Peptide separation)
测序(Sequencing)
N端的测定方法
Sanger法(FDNB法)
N端焦谷氨酸等封闭基团可妨碍常规N端标记;N端脯氨酸仍可与DNFB反应,不能 把所有非伯氨基一概视为不能标记。
唯一检测的不是切下来的游离残基而是检测被修饰的被切割后肽链N端的方法
Edman法(PITC法)
PTH-AA
洗下来的产物过HPLC
丹磺酰氯法(DNS-Cl):标记N端后水解鉴定;Edman降解另用异硫氰酸苯酯( PITC)逐步测序。
荧光试剂丹磺酰氯即“5-(二甲氨基)萘-1-磺酰氯”,也称丹酰氯(Dansyl chloride ,DNS-Cl)能与所有氨基酸反应形成高稳定性的带有荧光的DNS-氨基酸。灵敏度可 达10-10~10-9mol,比茚三酮法高10倍以上,比过去常用的FDNB法高100倍,可 用于蛋白质的氨基酸组成的微量分析
C端分析可用羧肽酶等方法;释放顺序和速率受末端残基及酶特异性影响,不能 据此保证任意蛋白均可完整顺序测定。
肼法
酶解法
PFPA和PFPAA法
PFPA:pentafluoropropionic acid五氟丙酸C₂F₅COOH
五氟丙酸酐可写作(C₂F₅CO)₂O,属于酸酐,不含过氧键。
重叠(Overlapping)
二硫键位置的确定(Disulfide bond position):双向电泳
胃蛋白酶处理后将水解肽段点样在滤纸中央,pH6.5条件进行第一向电泳,肽段按大小及电荷不同被分离
将滤纸暴露在过甲酸蒸气中,使-S-S-断裂,含二硫键的肽段被氧化成一对含磺基丙氨酸残基的肽段
二硫键经过甲酸氧化可形成半胱氨磺酸残基。
蛋白质的三维结构
测定蛋白质三维结构的方法
蛋白质三维结构的主要研究方法包括X射线晶体学、核磁共振和冷冻电镜;各方 法有适用对象和限制。
原理是:当X射线投射到蛋白质晶体样品时,蛋白质分子内部结构受到激发,入射线反射波互相叠加产生衍射波,衍射波含有被测蛋白质构造的全部信息,通过摄影即可得一张衍射图案(diffraction pattern),再用电脑进行重组,即可绘出一张电子密度(electron density map),从电子密度图可以得到样品的三维分子图象,即分子结构的模型
2dsinθ=nλ
NMR (Nuclear Magnetic Resonance)
核磁共振基于原子尺度的量子磁物理性质。具有奇数质子或中子的核子,具有内在的性质:核自旋,自旋角动量。核自旋产生磁矩
蛋白质三维结构概述
构象与构型
蛋白质构象主要涉及二级、三级和四级结构;一级结构指氨基酸序列及共价连接 关系。
构型(configuration):指一类涉及共价键改变的立体结构问题。如氨基酸的L-型和D-型
维持蛋白质空间构象的作用力及其破坏方法
氢键: α-螺旋,β-折叠
尿素,盐酸胍
疏水作用: 形成球蛋白的核心,蛋白质折叠的最大驱动力
去垢剂,有机溶剂
离子键: 三、四级结构
酸、碱
二硫键: 稳定三、四级结构
还原剂
配位键: 与金属离子的结合
螯合剂 EDTA
蛋白质的二级结构
定义
蛋白质的二级结构指蛋白质分子中某一段肽链的局部空间结构,即该段肽链主链骨架原子的相对空间位置,并不涉及氨基酸残基侧链的构象,主要靠氢键维持
肽键将氨基酸与氨基酸头尾相连
肽键的特点是C和N原子均为sp2杂化,具有平面结构。N原子上的孤对电子与羰基 之间形成p-π共轭体系
组成肽键的原子处于同一平面
绕Cα-N键轴旋转的二面角称为Φ(phi,/far/)
绕Cα-C键轴旋转的二面角称为ψ(psi,/psai,sar/ )
肽键中的C-N键具有部分双键性质,不能自由旋转
在绝大多数情况下,以反式(trans-)结构存在
拉马钱德兰图(Ramachandran plot)
拉马钱德兰图以主链二面角φ(N—Cα)与ψ(Cα—羰基C)表示构象允许区域;肽键 C—N的二面角通常另记为ω。
α-螺旋(α-helix)
α螺旋每圈约3.6个残基;第i个残基的羰基氧与第i+4个残基的N—H形成氢键,构 成含13个原子的氢键环。
蛋白质中的α-螺旋几乎都是右手的,右手的比左手的稳定。前提是α-螺旋都是由L-氨基酸残基组成的
左手螺旋中L-型氨基酸残基侧链的第一个碳原子过于接近主链上C=O的氧原子,以致结构不舒适,能量较高,构象不稳定
破坏α-螺旋的氨基酸残基
连续同种电荷的极性氨基酸
庞大侧链
Pro
肽链中的脯氨酸缺少可供氢键的骨架N—H,且限制主链构象,常使α螺旋弯折或终 止;位置和局部环境也会影响结果。
Gly
甘氨酸构象自由度较大,一般不利于稳定α螺旋,但不能说它绝不出现在α螺旋中。
β-折叠 ( β-sheet )
两条或多条几乎完全伸展的多肽链侧向聚集在一起,每个肽单元以Cα为旋转点,依次折 叠内锯齿状结构,相邻肽链主链上的-NH和C=Ο之间形成有规则的氢键,氨基酸侧链交替位于锯齿状结构上下方
氢键与肽链的长轴接近垂直,在肽链的长轴方向上具有重复单位,除作某些纤维蛋白质的基本构象外,β-构象还普遍存在于球状蛋白质中
两段肽链可以是平行的,也可以是反平行的,每一个氨基酸在主轴上所占的距离,平行的是0.325nm,反平行的是0.35nm
β-转角(β-turn)
多肽链180°回折部分所形成的一种二级结构
3₁₀螺旋中,第i个残基的羰基氧与第i+3个残基的N—H形成氢键。
β转角相当于半圈3.0(10) 螺旋
脯氨酸以其可以被PPI转化成顺式结构,甘氨酸分子结构小的特点,常常出现在β-转角处
PDI:protein disulfide isomerase 蛋白质二硫键异构酶
PPI:peptidyl prolyl isomerase 顺式/反式异构酶
Gly也常出现在转角处,因为小而可变
无规卷曲 ( random coil )
无规则卷曲是用来阐述没有确定规律性的那部分肽链结构,但许多蛋白质的功能部位常常埋伏在这里
用常见的蛋白考虑微观结构如何映射到宏观性质:纤维状蛋白质
α-角蛋白(α-Keratin)
含有αα超二级结构:由两股右手α-螺旋彼此缠绕而成的左手超螺旋
丝心蛋白(silk fibroin)
蚕丝和蜘蛛丝的主要成分
丝蛋白中的β折叠区提供强度;可伸展性还取决于非晶区与具体丝蛋白种类,不 能一概认为丝蛋白不能伸长。
典型的反平行β折叠片
胶原蛋白(Collagen)
也称胶原,动物骨、腱、软骨、皮肤的结构蛋白
胶原蛋白是骨有机基质的主要成分,与羟基磷灰石等矿物共同构成骨。软骨中胶 原形成支架,蛋白聚糖和水共同赋予其力学性能。
真皮中的胶原纤维提供抗拉强度,弹性纤维有助于组织伸展后恢复;含量比较应 区分湿重、干重及具体组织。
I型胶原蛋白在体内以胶原纤维形式存在,基本单位是原胶原蛋白分子(tropocollagen)
胶原蛋白的二级结构是由3条多肽链组成的三股螺旋,每个螺旋是左手螺旋,整体是右手超螺旋
胶原三螺旋只存在于胶原纤维中,肽链的96%按(Gly-x-y)的三联体重复出现,Gly的数目占残基的三分之一,x通常为Pro,y通常为Hypro和Hylys
链间的共价交联主要在Lys和5-羟Lys残基间形成,Ⅲ型胶原还有链间二硫键
羟脯氨酸的形成
维生素C就是防止脯氨酰4-羟化酶中的Fe²+被氧化,缺乏维生素C导致羟脯氨酸不能形成,进而导致collagen不能很好折叠,在生理上表现出坏血症,表现是毛细血管脆性增加,牙龈肿胀、出血、萎缩,常有鼻出血以及便血;还可导致骨钙化不正常及伤口愈合缓慢等
蛋白质超二级结构和结构域
超二级结构
是指二级结构的基本结构单位(α-螺旋,β-折叠等)相互聚集,形成有规律的二级结构的聚集体,主要有αα、 βαβ 、βββ等
最简单的βxβ组合是由二段平行的β链和一段连接链组成,连接链 是α-螺旋链或是无规则卷曲,此超二级结构为βxβ单位
最常见的βxβ组合是由三段平行的β-折叠链和二段α-螺旋链构成Rossmann折叠
结构域
结构域是蛋白质中相对独立折叠、常具有特定功能的单元;并非所有结构域都由 基因融合形成。
结构域是在二级结构或超二级结构的基础上形成的三级结构的局部折叠区,一条多肽链在这个域范围内来回折叠,但相邻的结构域常被一个或两个多肽片段连结
特点是在三维空间可以明显区分和相对独立,并且具有一定的生物学功能,如结合小分子
模体(motif)可指保守的序列模式或常见的局部结构组合;结构模体常由几个 二级结构单元构成,不一定独立折叠。
球状蛋白质与三级结构
一个蛋白的三级结构由一个或多个结构域组成;结构域是三级结构的功能和折叠模块,但三级结构还包括域与域之间的相对取向与整体结构
如果一个蛋白质天然只由一条多肽链组成且不与其它链形成复合体,那么它的最高折叠层次就是三级结构
蛋白质的四级结构
含有一个以上肽链的蛋白质呈现四级结构组织
四级结构指多个多肽亚基(subunits)的空间排列及相互作用。
三级结构是单链自身的三维折叠,亚基是多链蛋白中每条折叠链的单元
四级结构指的是亚基间的空间排布以及它们相互间作用的特征
四级结构也包括蛋白质与蛋白质的相互作用,蛋白质与核酸的相互作用。比较简单的体系有血红蛋白、限制性内切酶等,复杂体系有核糖体、病毒、肌肉蛋白等
组蛋白
带正电荷,和带负电的DNA结合
组蛋白修饰:组蛋白N末端常常伸出球形核小体结构以外,是翻译后进行修饰的主要部位,如Lys残基乙酰化、Lys和Arg残基甲基化、Ser和Thr残基磷酸化等,是表观遗传学的重要组成部分
序列特异性DNA结合蛋白
包括多种参与核酸代谢与修饰的酶类、核质蛋白、骨架蛋白、基因表达和染色体结构调节蛋白等
作用力
氢键:具有识别功能蛋白质的螺旋结构常与DNA的大沟相互作用
离子键:蛋白质的带电的氨基酸残基的侧链与DNA分子上的带电基团形成离子键
疏水相互作用:大沟中暴露的T甲基等基团可与蛋白质的疏水侧链相互作用。
结构模式
HTH(Helix-turn-Helix)
螺旋—转角—螺旋(HTH)是一类常见DNA结合模体;其中识别螺旋常进入DNA大沟。 含HTH的蛋白不一定都是同源二聚体。
锌指结构(Zinc Finger Structure)
锌指由Zn²⁺配位稳定结构,配位残基常为Cys或His;除经典C₂H₂型外,还存在C₄ 等多种类型。
经典C₂H₂锌指通常含约30个残基;各类锌指的长度、残基间隔和折叠形式并不相 同。
Leucine-zipper(亮氨酸拉链)
蛋白质分子的肽链上每隔6个氨基酸就有1个亮氨酸残基,结果就导致这些亮氨酸残基都在螺旋的同一个方向出现。两个相同结构的两排亮氨酸残基就能以疏水键结合成二聚体,该二聚体的另一端的肽段富含碱性氨基酸残基,借其正电荷与DNA双螺旋链上带负电荷的磷酸基团结合。若不形成二聚体则对DNA的亲和结合力明显降低
蛋白质的生物学功能:典型的例子
氧结合蛋白质——肌红蛋白:贮存氧 myoglobin, Mb
血红素Heme是Mb和Hb共有的辅基
铁卟啉化合物,由4个甲炔基相连成为一个环形,Fe²+居于环中。铁离子有6个配位键,其中4个与吡咯环的N配位结合,1个配位键和肌红蛋白的93位(F8)组氨酸残基结合,氧(O₂)则与Fe²+形成第6个配位键,接近第64位(E7)组氨酸
近端His直接配位血红素Fe²⁺;远端His不直接配位铁,可通过氢键等稳定结合的 O₂并影响配体选择性。
补充概念:可逆的Protein-Ligand相互作用
肌红蛋白是很好的储氧物质
氧结合蛋白质——血红蛋白:转运氧 hemoglobin, Hb
Hb的结构
血红蛋白具有四个亚基组成的四级结构,每个亚基中间有一个疏水局部,可携带一个血红素并携带一分子氧,因此1分子Hb共结合四分子氧
Hb各亚基的三级结构与Mb极为相似
Hb的不同状态
结合了一个氧气就叫HbO2了,虽然还有正协同效应
被应用于检测血氧饱和度
血红蛋白有两个主要的构象:R态(relaxed)和T态(tense),氧可以与两种状态结合,但对R态的亲和力更大
无氧结合时,T态更稳定,表现出去氧血红蛋白(deoxyhemoglobin)的 主要的构象(离子对作用更稳定)
α₁β₁(或α₂β₂)界面间存在强相互作用,尿素处理后得到αβ二聚体
T态向R态的转变
氧气与Hb一个亚基的T态结合,引起构象改变为R态,当整个蛋白质发生这样的构象改变,单个亚基的结构几乎没有改变。但αβ亚基对相互滑动和旋转,使得β亚基间的口袋变窄,Fe被拉回到卟啉环平面卟啉环圆顶状转为平面His F8牵拉F螺旋
正协同效应
紧接着上面的过程,F肽段等一系列微小的移动,同时影响附近肽段的构象,造成两个亚基间离子键断裂,使亚基间结合松弛,可促进第二个亚基与O₂结合,依此方式可影响第三、四个亚基与O₂结合最后四个亚基全处于R态,中间还涉及到关键的BPG释放,我们在下面会进一步介绍
Hb对氧气的亲和性总体低于Mb
Hill方程
反应式与假设
Hill模型的假设
结合常数Ka
解离常数与半饱和浓度
占有率
分数饱和度
注意这里的定义和上面是一样的,一个简单的普通化学在压强视角下的平衡
Hill线性化
Hill线性化
分析
Hill系数的含义
对Hb来说
血红蛋白的经验Hill方程
成人Hb在常见实验条件下,Hill系数约为2.8—3,反映正协同性;它随条件和饱 和度而变,不等于4个结合位点的数目。
对于肌红蛋白Mb而言,Hill系数为1,意味着没有协同性
变构效应 allosteric effect
序变模型 Sequential Model
齐变模型 Concerted Model
BPG能显著降低Hb对氧气的亲和力
糖酵解中间体,在红细胞中大量存在
负电荷的BPG和两个β链之间的正电荷氨基酸通过离子键结合,有助于稳定T态血红蛋白构象,促进氧的释放。R态血红蛋白中,中央空穴变得太小,容纳不了BPG
一个四聚体普通Hb可以和一个BPG结合
当血液流经O₂分压较低的组织时,红细胞中的BPG(2,3-二磷酸甘油酸)能促进氧合血红蛋白释放更多的O₂,以满足组织对O₂的需要。BPG的浓度越大,则O₂的释放量越多
红细胞中BPG浓度的变化是调节血红蛋白分子对O₂亲和力的重要因素。在空气稀薄的高山上的人,或者换气困难的肺气肿病人,其红细胞中的BPG代偿性的增加,使为数不多的氧合血红蛋白分子尽量的释放O₂,以满足组织对O₂的需要
波尔效应
H+浓度和CO₂促使P50分压的提高,能够降低血红蛋白分子对O₂的亲和力,促使氧合血红蛋白的氧解离曲线右移
促进在肌肉中释放结合的氧气
CO中毒
游离的血红素结合CO的能力超过结合O₂的能力25,000倍
CO对游离血红素的亲和力远高于O₂;蛋白质口袋显著改变这一比值。Hb对CO的亲 和力常约为O₂的200倍量级,不能把该数值直接套给Mb。
远端His及结合口袋的几何环境共同调节配体结合,并通过氢键稳定O₂;不能只 用空间位阻解释O₂与CO选择性。
血红蛋白分子病
镰状细胞贫血症(Sickle-Cell Anemia)
单个氨基酸突变
Hb A的β链第6位为谷氨酸(Glu,E)(GAA、GAG)
正常的
Hb S的β链第6位为缬氨酸(Val,V)(GUA、GUG)
比Hb A少两个负电荷,同时,增加的Val引发的疏水作用进一步引起分子发生线性缔合,形成长链。多条长链进一步聚集成多股螺旋的不溶性纤维
Hb C的β链第6位为赖氨酸(Lys,K)(AAA、AAG)
镰状细胞病与HbS有关:β链第6位Glu被Val替换,脱氧HbS易聚合并使红细胞变形。 HbC则是同一位置Glu→Lys,二者不同。
蛋白质的性质、分离纯化和鉴定
蛋白质在水溶液中的行为
蛋白质的两性电离
类比氨基酸
当蛋白质溶液处于某一pH时,蛋白质解离成正、负离子的趋势相等,即成为兼性离子(zwitterion),净电荷为零,此时溶液的pH称为蛋白质的等电点。处于等电点的蛋白质颗粒,在电场中并不移动
http://web.expasy.org/compute_pi/
蛋白质的胶体性质
与相变有关
蛋白质在等电点溶解度最小
许多蛋白质在等电点附近溶解度较低,易聚集或沉淀;具体行为还取决于蛋白质 结构及溶液条件。
透析Dialysis
与低分子物质相比,蛋白质分子扩散速度慢,粘度大,不易透过半透膜
透析即用半透膜(透析袋)将大分子蛋白质保留下来。在生物大分子制备过程中除去盐、少量有机溶剂、生物小分子杂质和浓缩样品,透析法最简便
透析时,小分子在透析膜二边溶液浓度差产生的扩散压作用下渗过透析膜,其速度与浓度梯度、膜面积及温度成正比
超滤Ultrafiltration:和透析大致类似,区别是要外加压力
蛋白质的紫外吸收
经验公式:蛋白质浓度mg/ml=1.45A280-0.74A260
假设1mg蛋白质/ml溶液的A280为1.0
蛋白质的呈色反应
茚三酮反应(ninhydrin reaction)
蓝紫色
双缩脲反应(biuret reaction)
稀碱溶液+硫酸铜:紫色
其他反应
蛋白质的变性、沉淀和凝固
蛋白质变性是我们在实验中需要极力避免的问题,其涉及的因素可能包括
物理因素:加热、加压、超声波、紫外线
化学因素:胍、脲、有机溶剂、强酸强碱、β-巯基乙醇、重金属离子、生物碱试剂
变性后理化性质的改变
溶解度降低
变性的蛋白质更容易沉淀protein precipitation,但注意有时蛋白质发生沉淀的时候没有变性
粘度增加
结晶能力消失
生物活性丧失
易被蛋白酶水解
凝固作用(protein coagulation)
蛋白质变性及凝固主要涉及高级结构破坏和分子聚集,通常不使肽键断裂;肽键 断裂属于水解或其他共价降解。
蛋白质所形成的亲水胶体颗粒具有两种稳定因素,即颗粒表面的水化层和电荷,没有它们,蛋白质很容易析出
盐析(Salting Out):在蛋白质溶液中加入大量的中性盐,破坏蛋白质胶体的稳定性而使其析出
盐析常可用于保持活性的蛋白质分离,但是否可逆及活性是否保留取决于蛋白质 和操作条件。
重金属盐沉淀蛋白质
蛋白质可以与重金属离子如汞、铅、铜、银等结合成盐沉淀,沉淀的条件以pH稍大于等电点为宜。因为此时蛋白质分子有较多的负离子,易与重金属离子结合成盐。重金属沉淀的蛋白质常是变性的
重金属离子可结合蛋白质的巯基等基团,导致失活或沉淀;这一原理不能直接作 为自行口服蛋白质解毒的依据。
生物碱试剂
蛋白质可与生物碱试剂以及某些酸(如三氯醋酸、过氯酸、硝酸)结合成不溶性的盐沉淀,沉淀的条件应当是pH小于等电点,这样蛋白质带正电荷易于与酸根负离子结合成盐
临床血液化学分析时常利用此原理除去血液中的蛋白质,此类沉淀反应也可用于检验尿中蛋白质
有机溶剂
常温下导致变性,低温还可以
蛋白质分离纯化的方法
破碎细胞及离心
裂解的常用方式
动物细胞-低渗
植物细胞-研磨
真菌-超声
分离亚细胞组分的方法:离心
沉降系数(sedimentation coefficient):沉降系数是量化密度沉降速率的指标,通常表达为Svedberg units (S),大体与分子量成正比
初提
盐析
有机溶剂沉淀
等电点沉淀
精纯化
离子交换层析:利用电荷差异
所用的介质:羧甲基和二乙氨基乙基
凝胶过滤(体积排阻层析)主要按水动力体积分离;大分子较早洗脱。用标准蛋 白估计分子量时,分子形状也会影响结果。
疏水/反相层析:利用亲疏性差异
亲和层析:利用特异性亲和
最常用:GST (Glutathione S‑transferase,谷胱甘肽硫转移酶)亲和层析常用的配体是还原型谷胱甘肽(Glutathione,简称 GSH),通常以谷胱甘肽琼脂糖(或谷胱甘肽 Sepharose)形式固定在树脂上,用于捕获 GST‑融合蛋白
物理层析:利用非特异性亲和
蛋白质的分离和相对分子质量的测定——蛋白质电泳
关于水平式电泳仪和垂直式电泳仪的区别
琼脂糖凝胶和聚丙烯酰胺凝胶的孔径范围不同,应按分子大小与分辨率要求选择; 不能笼统归因于电场是否均匀。
聚丙烯酰胺凝胶孔径较小且可调,常用于蛋白质及较短核酸的高分辨率分离。
SDS-PAGE
丙烯酰胺(Acrylamide)聚合反应
Acr:丙烯酰胺,形成纵向骨架
Bis:亚甲基双丙烯酰胺,形成横向网络连接
APS:过硫酸铵,产生自由基
TEMED:四甲基乙二胺,催化APS稳定产生自由基
基本原理
阴离子去污剂SDS:破坏蛋白质分子之间及与其它物质分子之间的非 共价键,使蛋白质变性而改变其原有的构象,并同蛋白质分子充分结 合形成带负电荷的蛋白质-SDS复合物
强还原剂巯基乙醇:打开蛋白质分子内的二硫键使这种结合更加充分
结合了SDS的蛋白质在水溶液中的形状类似于长椭圆棒,不同的蛋白 质-SDS复合物其椭圆棒的短轴长度恒定,而长轴的长度则与蛋白质 分子量的大小成正比
这样的蛋白质-SDS复合物在电场作用下,其迁移率便不再受蛋白质 原有的净电荷及形状等因素的影响,而主要取决于其分子量大小这一 因素。根据这一特点,就可以将各蛋白组分按分子量大小分开
SDS聚丙烯酰胺凝胶的有效分离范围取决于用于灌胶的聚丙烯酰胺的浓度和交联度
这些小孔的孔径随“双丙烯酰胺~丙烯酰胺”比率的增加而变小,比率接近1:20时孔径达到最小值。SDS聚丙烯酰胺凝胶大多按“双丙烯酰胺~丙烯酰胺”为1:29配制,试验表明它能分离大小相差只有3%的蛋白质
PAGE根据其有无浓缩效应,分为连续系统和不连续系统两大类
连续系统电泳体系中,缓冲液pH值及凝胶浓度相同,带电颗粒在电场 作用下,主要靠电荷和分子大小效应
不连续系统中由于缓冲液离子成分、pH、凝胶浓度及电位梯度的不 连续性,带电颗粒在电场中泳动不仅有电荷效应,分子筛效应,还具 有浓缩效应,因而其分离条带清晰度及分辨率均较前者佳
常见Laemmli SDS-PAGE体系:浓缩胶pH约6.8,分离胶pH约8.8;具体体系的配方 和pH可不同。
原理:两面包夹之势
电泳分离结果处理
等电聚焦与双向电泳
等电聚焦是一种利用pH梯度电场使蛋白质迁移并聚集于各自等电点的分离方法;双向电泳则将等电聚焦作为第一维,再结合 SDS–PAGE 作为第二维,实现蛋白质的高分辨率二维分离
蛋白质分离后的分析,包括鉴定,含量测定和纯度测定
经过电泳分离后蛋白质在凝胶中难于进行进一步分析如氨基酸序列分析、氨基酸组成分析等,需将它们转移至有一定韧性并且化学惰性的高分子支持物上,目前最常用的是PVDF(Polyvinylidene Fluoride,聚偏氟乙烯)一类膜,具有吸附蛋白质能力强的特性,特别适合于氨基酸组成分析和序列分析
Western Blot蛋白质免疫印迹
酶联免疫吸附剂测定(Enzyme-Linked Immuno-sorbent Assay,ELISA):利用酶标记的抗体或抗原特异性结合样本中目标分子,并通过底物与酶反应产生的可测量信号(如显色或荧光)来定量检测其浓度的免疫学方法
三明治法(sandwich)常用于检测大分子抗原
间接法(indirect)常用于检测抗体
竞争法(Competitive)一般用于检测小分子抗原
凯氏定氮法
样品与浓硫酸和催化剂一同加热消化,使蛋白质分解,其中碳和氢被氧化为二氧化碳和水逸出,而样品中的有机氮转化为氨,与硫酸结合成硫酸铵(NH₄)₂SO₄;然后加碱蒸馏,使氨(NH₃)蒸出
用H₃BO₃吸收后再以标准HCl溶液滴定。根据标准酸消耗量可以计算出蛋白质的含量
也可以用过量的标准H₂SO₄或标准HCl溶液吸收后再以标准NaOH滴定过量的酸
经验公式:蛋白质含量约等于N含量*6.25
紫外吸收法
经验公式:蛋白质浓度mg/ml=1.45A280-0.74A260
另有215 nm和225 nm的吸收差法,蛋白质的肽键在200-250 nm有强的紫外光吸收,其光吸收强弱在一定范围内与浓度成正比,且波长越短光吸收越强。蛋白质浓度(mg/ml)=0.144(A215-A225)(测定范围为20-100μg蛋白质/ml)
基于朗伯比尔定律的方法
常用蛋白质定量方法
酶学
酶的化学本质及其组成
酶的活性中心
酶的活性中心的特性
酶的活性中心一般是三维结构上的凹陷部分
活性中心是特定的三维微环境,既可含疏水区域,也常含参与结合和催化的极性 或带电基团。
酶的活性中心只占酶的一小部分
底物通过弱相互作用力与酶结合(3-12 kcal/mol)
包括结合基团和催化基团
辅助因子(金属离子和有机小分子)
辅酶(coenzyme):与酶蛋白结合疏松,可用透析或超滤的方法除去
一个例子:辅酶Q(Coenzyme Q)
辅酶Q是线粒体呼吸链中的脂溶性电子载体,还可参与抗氧化过程;不能因此认 定补充CoQ是预防动脉粥样硬化的最有效方法。
参与细胞线粒体呼吸链组成,与细胞能量代谢密切相关
辅基(prosthetic group):与酶蛋白结合紧密,不能用透析或超滤的方法除去
酶的命名和分类
习惯命名法——推荐名称
Enzyme Names:S+type of reaction+‘ase'
例如:Lactate dehydrogenase(乳酸脱氢酶),ATP synthase (ATP合成酶)
系统命名法——系统名称
EC 2.7.4.4
EC:Enzyme Commission 酶学委员会
第1个数字(2)代表酶的分类名称(转移酶类)
EC酶分类:现行七大类
Ligase(连接酶,EC 6)通常将键形成与NTP水解耦联;synthase与synthetase 是命名习惯,不能单凭名称断定EC类别或是否用ATP。
第2个数字(7)代表亚类(磷酸转移酶类)
第3个数字(4)代表亚亚类(以磷酸基作为受体的磷酸转移酶类)
第4个数字是该亚亚类中酶的序号;EC 2.7.4.4为核苷酸激酶,催化ATP向核苷单 磷酸转移磷酰基。
酶促反应的特点和机理
酶与一般催化剂的共同点
在反应前后没有质和量的变化
只能催化热力学允许的化学反应
只能加速可逆反应的进程,而不改变反应的平衡点
酶促反应的特点
高效
酶促反应具有极高的效率
酶加速反应的机理是降低反应的活化能(activation energy)
活化能:底物分子从初态转变到活化态所需的能量
一般来说,酶的活性中心往往首先强烈地和底物的过渡态(活化态)结合
拓展:抗体酶(abzyme):抗体作为酶介导的催化作用
合成已知化学反应的稳定过渡态类似物,并将其用作半抗原以免疫小鼠。基于与过渡态类似物的高结合力来选择单克隆抗体。一些高结合剂与过渡态表现出良好的互补性,因此当与底物一起孵育时能够加速催化作用
特异
酶促反应具有高度的特异性
绝对特异性
相对特异性
立体结构特异性
可调节性
对酶生成与降解量的调节
酶催化效力的调节
通过改变底物浓度对酶反应速率进行调节。
酶促反应的机理
酶-底物复合物ES的形成
锁-钥学说 Lock and Key Model
诱导契合假说 Induced Fit Model
酶与底物相互接近时,其结构相互诱导、相互变形和相互适应,进而相互结合
酶促反应的催化机制
酸-碱催化(质子转移)
可作为质子供体/受体的氨基酸
如核糖核酸酶 A(RNase A)
共价催化
短暂的共价结合在酶和底物之间发生
共价催化指酶与底物形成暂时的共价中间体;乒乓机制是双底物反应的动力学模 式,两者不完全等同。
如胰凝乳蛋白酶(Chymotrypsin)
金属离子催化
作为路易斯酸(Lewis acid)接受电子,使亲核基团或亲核分子(如水分子)的亲核性更强
与带负电荷的底物结合,屏蔽负电荷,促进底物在反应中正确定向
多数激酶以Mg²⁺—ATP或其他金属—核苷酸复合物为实际底物;金属需求因酶而异。
参与静电催化,稳定带有负电荷的过渡态
通过价态的可逆变化,作为电子受体或电子供体参与氧化还原反应
如细胞色素氧化酶中的血红素a₃-CuB双核中心催化氧接受4个电子的过程
本身是酶结构的一部分
酶的活力测定和分离纯化
Total protein (总蛋白):某一部分中存在的蛋白质的量通过测定各部分的一部分的蛋白质浓度,并乘以该部分的总体积来获得
总活性=单位体积酶活性×该组分的总体积;比活性=总活性/总蛋白质量。比较 时须使用相同测定条件。
Specific activity (比活性):此参数通过将总活性除以总蛋白来获得
Yield (产率):此参数是衡量每次纯化步骤后保留的活性占粗提物中活性的百分比。初始提取物中的活性量被视为 100%。
Purification level (纯化水平):此参数是衡量纯度增加的指标,通过将每次纯化步骤后计算的比活性除 以初始提取物的比活性来获得
酶促反应动力学
米-曼方程
推导
关于米氏常数
Km是米氏动力学参数;仅在快速平衡等特定条件下可近似反映ES的解离常数,不 能普遍等同于结合亲和力。
米氏方程曲线是直角双曲线的一部分
米氏方程与双曲线
酶活性部位被底物饱和的百分数
酶的转换数 Turnover number(催化常数 catalytic constant)
当酶被底物充分饱和时,单位时间内每个酶分子催化底物转变为产物的分子数,也叫转换数,在上述米氏方程的假设中,kcat=k₂
专一性常数
kcat/Km用于比较低底物浓度下的催化效率,单位为M⁻¹·s⁻¹;扩散控制上限通常 约10⁸—10⁹ M⁻¹·s⁻¹。
Lineweaver-Burk双倒数作图法
其他作图法
Hanes-Woolf
Eadie-Hofstee
影响酶促反应的因素
浓度,温度,pH值的影响,高中生物,略
抑制剂使酶催化活性下降,常具有一定选择性。酶抑制与一般变性应加以区分, 但不能以“绝不引起变性”作为所有抑制剂的定义。
可逆性抑制(reversible inhibition):抑制剂以非共价键与酶或酶-底物复合物可逆性结合,使酶的活性降低或丧失;抑制剂可用透析、超滤等方法除去
竞争性抑制(competitive inhibition)
米氏方程变体推导
竞争性抑制:表观Km增大,Vmax不变;在简单米氏模型下,提高底物浓度可减轻 抑制。
反竞争性抑制(uncompetitive inhibition)
米氏方程变体推导
混合抑制(mixed inhibition)
混合型抑制:表观参数
混合型抑制使表观Vmax降低;表观Km可增大或减小,取决于抑制剂对E与ES的相 对亲和力。
不可逆性抑制(irreversible inhibition):抑制剂通常以共价键与酶活性中心的必需基团相结合,使酶失活,不能用透析、超滤等方法予以除去
Group Specific Reagent
inhibitor does not resemble substrate
如:有机磷化合物对羟基酶的抑制,重金属离子及砷化合物毒性
Substrate Analogue
inhibitor resembles substrate
Transition-state Analogue
inhibitor resembles transition state
机制型抑制剂(自杀性抑制剂):经酶催化生成活性中间物,使酶失活。
inhibitor resembles substrate,turns "dangerous"after processed by enzyme
如:盘尼西林
酶活性测定和酶活性单位
酶的活性单位:在规定条件下,酶促反应在单位时间(s、min或h)内生成一定量(mg、μg、μmol等)的产物或消耗一定数量的底物所需的酶量
国际单位(IU):在特定的条件下,每分钟催化1μmol底物转化为产物所需的酶量为一个国际单位
催量单位katal:在规定条件下,每秒催化1 mol底物转化所需的酶量为1 kat。
酶活性的调节
按机制
别构效应
别构剂非共价结合
绝大多数别构酶是多亚基蛋白质复合物
基因调控
部分细菌产生β-内酰胺酶,水解青霉素等抗生素的β-内酰胺环而产生耐药性;这 里不是β-半乳糖苷酶。
另一个例子是在人体肝脏中存在一类酶对于药物代谢非常重要的酶,细胞色素P450氧化酶;对这一类酶的诱导或抑制,会导致药物相互作用
抑制剂和激活剂
胰蛋白酶原在十二指肠经肠肽酶激活;胰蛋白酶再激活其他胰蛋白酶原及多种胰 酶酶原。
细胞内的区室化分隔
流感病毒血凝素先经蛋白酶切割获得融合能力,随后在内体低pH环境发生构象变 化,介导膜融合;低pH构象变化本身不属于共价修饰。
翻译后修饰
快速调节的主要方式
酶原与酶原的激活
酶原(zymogen):有些酶在细胞内合成或初分泌时只是酶的无活性前体,此前体物质称为酶原
避免细胞产生的酶对细胞进行自身消化,并使酶在特定的部位和环境中发挥作用,保证体内代谢正常进行
有的酶原可以视为酶的储存形式。在需要时,酶原适时地转变成有活性的酶,发挥其催化作用
变构酶(Allosteric enzymes)
酶的共价修饰调节:经济高效,一般具有级联效果
磷酸化与脱磷酸化(最常见)
乙酰化和脱乙酰化
甲基化和脱甲基化
腺苷化和脱腺苷化
二硫键的氧化还原
同工酶(isoenzyme)是指催化相同的化学反应,但酶蛋白的分子结构、理化性质乃至免疫学性质不同的一组酶
乳酸脱氢酶的同工酶(LDH1~LDH5)
糖类和糖生物学
单糖的结构和性质
糖的定义
多羟基的醛、酮及其缩聚物和一些衍生物(氧化产物、还原产物、氨基取代物及糖苷化合物)
糖的组分
(CH2O)n
反例:岩藻糖,鼠李糖
糖的构型
单糖的构型以甘油醛为参照标准,甘油醛C₂为手性碳,与其相连的-OH在右边( Fischer投影式)的被定为D型、在左边的被定为L型,D型和L型互为立体异构体, 是一对对映体(antipode), 具有对映体的结构又称手性结构
单糖的构型由于手性碳通常不止一个,特规定:离羰基最远的不对称C上的-OH方向决定糖的构型,在右边的被定为D型、在左边的被定为L型
糖的旋光性(Optical Rotation)
多数单糖具有手性,但并非全部;二羟丙酮没有手性中心,不具旋光性。
糖的构型与旋光性之间不一定呈“一致”对应,即D型糖不一定是右旋糖、L型糖也不一定是左旋糖,两者的规定性不同。对于葡萄糖来说,D型正好是右旋,即D-(+)-Glc、L型也正好是左旋,即L-(-)-Glc,天然葡萄糖为右旋,属于D-(+)-Glc
重要的单糖Monosaccharide和单糖衍生物
醛醣
葡萄糖Glucose;果糖Fructose;半乳糖Galactose
D-核糖的Fischer式中C2、C3、C4羟基均在右侧;2-脱氧-D-核糖的C2不是手性中 心。D-葡萄糖为右左右右,D-甘露糖为左左右右,D-半乳糖为右左左右;后两者 分别是葡萄糖的C2、C4差向异构体。
酮糖
注意果糖(酮基左右右)
木糖Xylose在粘多糖、蛋白聚糖中发挥重要连接作用
重要异构对
葡萄糖和果糖
核糖和脱氧核糖
甘油醛和磷酸二羟丙酮
葡萄糖的半缩醛
Fischer投影式转化为Haworth透视式
成环产生两种异构体,只差在顶端的半缩醛
异构体称为端基差向异构体,或异头物
α、β表示异头碳与参考手性中心的相对构型;对常见D-吡喃糖的Haworth式,异 头羟基与末端羟甲基同侧为β,异侧为α。
变旋作用
醛糖的C₁或酮糖的C₂成环时产生α和β一对差向异构体,在水溶液中很快互相转变为混合物,溶解过程会发生旋光度的改变——变旋现象Mutarotation,这是α和β异头物自发互变所导致的
果糖成环时,可由C5上的羟基与C2的羰基形成呋喃式环,也可由C6上的羟基与羰 基形成吡喃式环,两种氧环式都有α和β两种构型
如何考察结构?
甲基化分析先把游离羟基转化为甲醚,再水解糖苷键并分析产物,以推断连接位 置;此处形成的是醚,不是甲酯。
单糖的化学性质
氧化反应
吡喃型和呋喃型分别含六元与五元环;环外—CH₂OH称羟甲基。糖酸可发生分子内 酯化形成内酯。
还原糖和非还原糖
凡是对斐林试剂(Fehling's reagent)、土伦试剂(Tollen's reagent)及班氏试剂(Benedict reagent)呈阳性反应的糖被称为还原糖,呈阴性反应的糖为非还原糖
斐林(Fehling)试剂(硫酸铜和碱性酒石酸钾钠)
硫酸铜与碱溶液混合加热,则生成黑色的氧化铜沉淀。若同时有还原糖存在,则产生黄色或砖红色的氧化亚铜沉淀
Fehling试剂中的酒石酸根与Cu²⁺形成可溶性配合物,使铜在碱性条件下保持于 溶液中,避免大量氢氧化铜沉淀。
Fehling试剂可检出还原糖;果糖等酮糖在碱性条件下可经烯二醇互变转化为醛 糖,也呈阳性。
班氏(Benedict)试剂(柠檬酸钠、硫酸铜、碳酸钠配制成)
班氏(Benedict)试剂是斐林(Fehling)试剂的改良。Benedict试剂利用柠檬酸作为Cu²+的络合剂,其碱性较Fehling试剂弱,灵敏度高,干扰因素少
可用于血糖的简易测定
改良:葡萄糖氧化酶法:葡萄糖氧化酶生成的过氧化氢与染料分子(甲苯胺)作用显色,生成的颜色深浅与被氧化的葡萄糖的量成正比
土伦(Tollens)试剂(硝酸银的氨水溶液)
有一个bug
果糖等酮糖可在碱性条件下经烯二醇互变形成醛糖,因此属于还原糖。
还原反应
葡萄糖C₁上的-CHO可被还原为-OH而生成山梨醇(Sorbitol),山梨醇聚积在糖尿病患者的晶状体可引起白内障
果糖的还原反应,可生成差向异构体
酯化反应
单糖的多个羟基可形成酯,例如磷酸酯、硫酸酯或乙酸酯;形成位置由化学条件 或酶特异性决定,不局限于异头羟基。
生成醚
在酸催化下,只有糖的半缩醛羟基能与另一分子醇反应形成醚键
用威廉森(Williamson)反应可使糖上所有的羟基(包括半缩醛的羟基)形成醚
成苷(Glycosidation)反应
单糖环状结构中的半缩醛羟基比其他羟基活泼,可与其他分子的-OH(或活性H原子)反应,缩去一分子水而成糖苷(又称甙或配糖体), 失水时形成的键叫糖苷键
苷似醚但不是醚,它比一般的醚键易形成,也易水解
关键就在于一边氧连接的不是普通烃基,而是糖环,原来是半缩醛
糖苷从结构上看是缩醛,在碱性条件下是稳定的,但可用温和的酸性条件水解,生成糖和配基。而普通的醚键在温和的酸性条件下是稳定的,只有在强酸作用下才分解
成脎反应
还原糖与过量苯肼反应,羰基及邻位碳参与形成糖脎,可用于结构鉴别。
糖脎形成反应
生成糖脎的反应是发生在C1和C2上,不涉及其他的碳原子,所以,如果仅在第二 碳上构型不同而其他碳原子构型相同的差向异构体(比如葡萄糖和甘露糖),必 然生成同一个脎
D-果糖脎=D-葡萄糖脎,此反应还可用于将葡萄糖转变成果糖
寡糖Oligosaccharide
由2-10个(或十数个)单糖通过糖苷键连接而成,一般易溶于水、具甜味
双糖
海藻糖
也是非还原糖
海藻糖在高温、高寒、高渗透压及干燥失水等恶劣环境条件下在细胞表面能形成独特的保护膜,有效地保护蛋白质分子不变性失活,从而维持生命体的生命过程和生物特征
麦芽糖(Maltose)
O-α-D-吡喃葡萄糖基-(1→4)-β-D-吡喃葡萄糖
有一个半缩醛羟基
有变旋
能成脎
被氧化
蔗糖(Sucrose)
D-吡喃葡萄糖α-1→2-β-D-呋喃果糖苷
果糖形成糖苷键正好是用的半缩醛羟基,现在蔗糖没有半缩醛羟基了,成为非还原糖
蔗糖的转化:蔗糖水解反应中伴随有从+到-的旋光符号的变化
在蔗糖的水解反应中,反应物蔗糖是右旋物质,其比旋光度(α)D20=66.5°;产物葡萄糖是右旋物质,其比旋光度(α)D20=52.6°;果糖是左旋物质,其比旋光度(α)D20=-92°。随着水解的进程,溶液的旋光度会从右旋至零再到左旋
纤维二糖(Cellobiose)
D-葡萄糖-β(1,4)-D-葡萄糖苷
乳糖(Lactose)
O-β-D-吡喃半乳糖-(1→4)-β-D-吡喃葡萄糖苷
三糖
天然存在的三糖,有龙胆属(龙胆)根中的龙胆三糖,广泛分布于甘蔗等的棉子糖,以及松柏类分泌的松三糖和车前属种子中分离出的车前三糖等。其他,作为多糖部分水解产物的有麦芽三糖等
棉子糖(Raffinose)=半乳糖+葡萄糖+果糖
多糖Polysaccharide
同多糖homoglycans/homopolysaccharide:水解后为同一单糖
淀粉(Starch)
直链淀粉平均250-300个α-D-Glc通过α-1,4糖苷键相连,旋转卷曲成螺旋状,每6个Glc残基盘旋一圈
淀粉碘反应主要源于多碘离子进入直链淀粉螺旋形成复合物;颜色取决于链长与 结构,不能理解为每圈固定结合一个I₂。
直链淀粉遇碘呈蓝色,支链淀粉遇碘呈紫红色,糊精遇碘呈蓝色、紫色、橙色等,糊精是淀粉分解的中间产物,其化学分子式与淀粉相同都是(C₆H₁₀O₅)n,但聚合度介于可溶性淀粉与麦芽糖之间
糖原(Glycogen)
有动物淀粉之称,细菌细胞中也有存在,动物组织内主要的贮藏多糖。肝脏、肌肉中含量多,分别称为肝糖原、肌糖原。结构与支链淀粉相似,但分支长度较短,一般由8-12个Glc残基组成,分支多,分子量高达10^6-10^8。遇I₂呈红褐色或棕红色。水解终产物是葡萄糖,对动物体血糖水平的调节重要
纤维素(Cellulose)
以纤维二糖(cellobiose)为基本单位连接而成,纤维状、僵硬、不溶于水,不分支,约由10000-15000个β-D-Glc残基以β(1→4)糖苷键连接而成
葡萄糖交替反转,充分伸展
木质素是由苯丙烷结构单元组成的具有复杂三维空间结构的非晶高分子,作为纤维素的粘合剂
几丁质(壳多糖)Chitin
由2-N-乙酰葡萄糖胺以β(1→4)糖苷键缩合而成,分子线状不分支
杂多糖由两种或更多种单糖残基组成;糖胺聚糖是其中一类,不能代表全部杂多 糖。
糖胺聚糖通常含重复二糖单元,其中一类为氨基糖;多数另一组分为糖醛酸,但 硫酸角质素含半乳糖而不含糖醛酸。
糖复合物中的单糖衍生物
甲基糖类
6-脱氧己糖,亲脂性增强。L-Fucose(岩藻糖)存在于大多糖蛋白的糖链、分子量较大的糖脂及血型抗原中,不存在于糖胺聚糖中。抗生素中也有存在
氨基糖类
葡糖胺(D-glucosamine,GlcN)
2-N-乙酰葡萄糖胺(2-N-acetylglucosamine,GlcNAc)
2-N-乙酰半乳糖胺(2-N-acetylgalactosamine,GalNAc)
糖醛酸类
唾液酸
多数糖胺聚糖共价连接核心蛋白形成蛋白聚糖;透明质酸不硫酸化,也不共价连 接核心蛋白。
透明质酸(hyaluronic acid,HA),又名玻尿酸
结构最简单的一种,有重复的二糖结构单位,D-GlcUA(葡萄糖醛酸)与GlcNAc(N-乙酰葡萄糖胺)以β-1,3糖苷键相连,二糖单位间以β-1,4连接,分子链状、无分支,分子量很大,在100-1000万之间
透明质酸在体内发挥保水、渗透压调节、维持组织形态、润滑、扩散屏障和缓冲应力等机械功能和重要的生理功能
硫酸软骨素(chondroitin sulfate,CS)
有4-硫酸软骨素(硫酸软骨素A)和6-硫酸软骨素(硫酸软骨素C)两种,二糖单位为D-GlcUA(葡萄糖醛酸)与GalNAc(N-乙酰半乳糖胺)以β-1,3相连,糖链生成后由专一性酶在4位或6位进行硫酸化
与形态维持、抵御病菌和毒素,以及皮肤创伤愈合有关
硫酸皮肤素(dermatan sulfate,DS;旧称硫酸软骨素B)。另须区分硫酸角质 素(keratan sulfate,KS),其重复单元含半乳糖与N-乙酰葡糖胺。
硫酸皮肤素的主要重复单元含L-艾杜糖醛酸与N-乙酰半乳糖胺;糖醛酸与氨基糖 之间常为α(1→3),相邻单元以β(1→4)连接,实际组成可含葡糖醛酸。
存在于许多动物组织,如猪肠胃粘膜、脐带、肌腱等
肝素(heparin,Hep)
肝素含糖醛酸与葡糖胺的重复单元,具有高度且不均一的N-硫酸化和O-硫酸化; 不能概括为仅含N-乙酰葡糖胺。
肝素通过增强抗凝血酶作用产生抗凝效应;常规血库保存全血通常采用枸橼酸盐 抗凝体系。
半纤维素
半纤维素是一组与纤维素共存的细胞壁多糖,包括木聚糖、甘露聚糖等;成员既 可为杂多糖,也可具有较单一的单糖组成。
糖缀合物Glycoconjugates:多糖和寡糖作为信息的载体与脂类或蛋白共价结合形成
糖脂(Glycolipids)
神经节苷脂是真核细胞的膜脂,糖的部分在膜外,脂的部分参与膜的组成
在细胞表面与细胞的各种识别事件相关,如鞘糖脂决定人类血型A、B、O
脂多糖(Lipopolysaccharides,LPS)
脂多糖是革兰氏阴性菌外膜显著的表面特征,是脊椎动物免疫体系针对细菌感染产生抗体的主要靶位,决定了细菌株系的血清型
糖蛋白(Glycoproteins)
N-连接与O-连接,详见细胞生物学
蛋白多糖(proteoglycans)
和上面粘多糖加蛋白质的整体
肽聚糖由N-乙酰葡糖胺与N-乙酰胞壁酸糖链及肽交联构成,革兰阳性、阴性细菌 均可具有。β-内酰胺是抗生素的环结构,不是肽聚糖的结构。
脂质和生物膜
贮存脂质——三酰甘油和蜡
脂肪酸(Fatty Acid)
碳链为4-36碳的羧酸,这些碳链可为饱和的和不分支的、可含有一个或多个双键、也可含有三碳的环或羟基
按脂肪酸的饱和度分为
饱和脂肪酸:碳链不含双键的脂肪酸为饱和脂肪酸(saturated fatty acid,SFA),含4~6碳的脂肪酸通常是饱和脂肪酸。脂肪多含有饱和脂肪酸。
不饱和脂肪酸:含有不饱和双键的脂肪酸称为不饱和脂肪酸(unsaturated fatty acid,UFA)。油多含有不饱和脂肪酸。
ω, Δ与双键的位置
ω为第一个双键距甲基端C的位置
Δ为第一个双键距羧基端C的位置
按脂肪酸的功能和来源
必需脂肪酸(Essential fatty acid,EFA)
是指人体不可缺少而自身又不能合成,必须通过食物供给的脂肪酸。 ω-6系列中的亚油酸(LA)和ω-3系列中的α-亚麻酸(ALA)是人体必需的两种脂肪酸
亚油酸
主要存在于植物油(如葵花油、玉米油和大豆油)中,在生理上可转化为 γ‑亚麻酸和花生四烯酸,参与细胞膜构成、信号分子合成及炎症反应调节
α-亚麻酸
α-亚麻酸(ALA)是必需的ω-3脂肪酸,存在于部分植物油中;人体可将其转化为 EPA、DHA,但转化效率有限。
必需脂肪酸长期摄入不足可影响皮肤和生长等功能;健忘、疲劳等非特异症状不 能单独归因于ALA缺乏。
ω-3脂肪酸参与神经和视网膜的结构与功能;婴幼儿发育同时受整体营养及多种 因素影响。
ALA的营养作用不能直接等同于药物疗效,也不能据此宣称其已被证实可抗癌或 治疗多种心血管疾病。
非必需脂肪酸
甘油三酯(Triacylglycerols,TG)
脂肪酸与甘油形成的最简单的脂是甘油三酯,也称三酰甘油、脂肪或中性脂肪
甘油酯中脂肪酸为同一种脂肪酸的称为单纯甘油酯(simpleglycerides),两种或两种以上的为混合甘油酯(mixed glycerides)
皂化反应(Saponification)
甘油三酯的酯键对酸、碱敏感,可被水解,脂肪在KOH或NaOH条件下加热,可产生甘油和脂肪酸的钠或钾盐,这种盐被称为皂
皂化值(Saponification Value):水解1g甘油三酯所需KOH的mg数为皂化值,从皂化值的数量可略知混合脂肪酸或混合脂肪的平均相对分子量
脂质过氧化(Lipid Peroxidation)
氧自由基攻击多不饱和脂肪酸(PUFA)引发的一种链式反应,导致细胞膜脂质损伤,生成有毒副产物,与多种疾病和衰老密切相关
油脂酸败(Rancidity)
脂肪长期暴露于潮湿闷热的空气中,受到空气的作用,脂肪酸被氧化、断裂生成醛、酮及低分子量脂肪酸,产生难闻的恶臭味,称之酸败
酸值(Acid Value,AV):中和1g油脂中游离脂肪酸所消耗KOH的mg数称为酸值
卤化(Halogenation)和碘价(碘化值,Iodine Number)
油脂中不饱和双键与卤素发生加成反应,生成卤代脂肪酸,称为卤化作用。100 g油脂所能吸收的碘的克数—碘值,可以用来判断油脂中不饱和双键的多少
氢化(Hydrogenation)
在Ni的作用下,甘油酯中的不饱和双键可以与H₂发生加成反应,油脂被饱和,液态变为固态,可防止酸败
甘油三酯的物理性质
溶解度:水不溶性,没有形成高度分散的倾向,甘油二酯和甘油单酯含-OH,可形成高度分散态
熔点:由脂肪酸组成决定,随饱和脂肪酸数目及碳链长度的增加而增加
光学性质:甘油本身无光学活性,C₁及C₃的脂肪酸不同时,C₂为不对称碳,有光学活性
蜡是长链脂肪酸与长链一元醇形成的酯;碳链长度因来源而异,不能把脂肪酸一 律限定为C14—C16。
由长链脂肪酸(14-16C)与长链碳醇(16-30C)形成的酯,是蜂蜡的主要成分,与甘油三酯比,三条变一条,头部变大
蜡的熔点为60-80℃,较甘油酯的为高
蜡因其防水性和坚硬度有广泛应用,脊椎动物一些皮腺分泌的蜡质保护它们的毛 发和皮肤的柔顺、润滑及防水;鸟类尤其水鸟由尾脂腺分泌蜡质而使它们的羽毛 不透水;一些热带植物被一层蜡质包裹以抵抗寄生物和水分的过分蒸腾
生物的蜡有一定的药学、化妆品及其他工业用途,如用于洗涤剂、油膏、口红及擦光剂等
膜结构脂质——磷脂、糖脂和固醇
甘油磷脂(Glycerophospholipid)
结构
一个脂肪酸变磷酸,磷酸的羟基继续连上不同的X基团
种类
PE:磷脂酰乙醇胺
PS:磷脂酰丝氨酸
PC:磷脂酰胆碱
磷脂酰胆碱(PC)具有亲水头部和两条疏水链;具体脂肪酸组成随组织与分子种 类而异。
两条疏水链使许多PC分子近似柱形,倾向形成脂质双层;临界堆积参数接近1时 可用来解释这一趋势。
PC的磷酸基带负电、胆碱带正电,在通常生理pH下头部净电荷为零,属于两性离 子型磷脂。
这些因素共同作用,使得PC在甘油磷脂中表现出最佳的乳化效果
卵磷脂(Lecithin):一种混合物,是存在于动植物组织以及卵黄之中的一组黄褐色的油脂性物质,其构成成分包括磷酸、胆碱、脂肪酸、甘油、糖脂、甘油三酸酯以及磷脂(如磷脂酰胆碱、磷脂酰乙醇胺和磷脂酰肌醇)
狭义卵磷脂是纯磷脂酰胆碱的同义词,而磷脂酰胆碱只是一种作为其磷脂部分主要成分的磷脂,脂肪酸可以不一样,是混合物
动、植物中广泛存在,脑、心、精液、肾上腺、红细胞中丰富,卵黄中的含量最高(8-10%)
构成生物膜的主要成分、乳化方式协助脂肪等运输、控制脂肪代谢和抗脂肪肝
可以提供胆碱,后者可以合成乙酰胆碱,是中枢胆碱能系统中重要的神经递质之一,其主要功能是维持意识的清醒,在学习记忆中起重要作用
PI:磷脂酰肌醇
醚脂
一些动物组织及单细胞生物富含醚脂(ether lipids),两个脂酰基的一个以醚键 方式与甘油连接,醚键连接的可以是饱和的,也可以在C₁-C₂间有一个双键,如 缩醛磷脂(plasmalogens)
缩醛磷脂属于醚磷脂,心脏、脑等组织均较丰富;参与膜结构及脂质信号等过程。 古菌的醚脂在骨架与疏水链结构上又有区别。
血小板活化因子(platelet activating factor,PAF)是一种醚脂(上图下面的结 构式)重要的激素,1-O-烷基-2-O-乙酰基-Sn-甘油-磷脂酰胆碱,是一种高活性 的磷脂介质,来源于体内多种细胞
PAF具有广泛的生理学作用,尤其作为一种重要的炎性介质,引起血管扩张和通透性增加、促进血小板聚集,并可激活炎症细胞释放5-羟色胺、组胺和前列腺素刺激因子,共同参与哮喘、过敏反应、急慢性炎性反应、败血性休克、关节炎、溃疡等疾病的炎症反应。对肝、平滑肌、心脏、子宫及肺组织收缩发挥作用
鞘脂(Sphingolipids)
结构
鞘氨醇是一种长链氨基醇;其生物合成由丝氨酸与棕榈酰CoA缩合起始,不等于 保留丝氨酸头部再接脂肪酸尾链。
种类
神经酰胺Ceramide
鞘磷脂Sphingomyelins,SM
含磷酸胆碱或磷酸乙醇胺,出现于细胞质膜和髓鞘
糖鞘脂:神经酰胺与糖基相连的一类脂质;脑苷脂是含单糖头部的糖鞘脂,不代 表全部糖鞘脂。
糖鞘脂是血型的决定因素
脑苷脂:神经酰胺连接一个单糖,如葡糖脑苷脂、半乳糖脑苷脂。
乳糖苷神经酰胺
神经节苷脂gangliosides
最复杂的鞘脂类化合物,含有几个糖单位组成极性的头部,人脑灰质中超过6%,大部分非神经动物组织含量极少
霍乱毒素(cholera toxin)首先在质膜上与神经节苷脂GM1结合,通过胞吞作用进入细胞,然后逆向运输进入内质网,从而引发毒性
类固醇(Steroids)
结构
由四个固定环组成类固醇的母核,四个环中的三个为六碳环,一个为五碳环,这种母核为环戊烷多氢菲(cyclopentanoperhydrophenanthrene)母核,整个环几乎是平面、僵硬的,C-C之间不能旋转
胆固醇有四环甾体骨架、一个羟基及烃侧链;其侧链本身不是脂肪酸,羟基可与 脂肪酸形成胆固醇酯。
类型
胆结石包括胆固醇结石和胆色素结石等,不能全部归因于胆固醇沉积。
胆固醇的测定:胆固醇氧化酶(无色变为棕色)
植物中发现有类似固醇物豆(固)醇(Stigmasterol)
真菌中有麦角甾醇(ergosterol),细菌中极少含有胆固醇
一些激素和几乎所有的性激素都是固醇;维生素D也是固醇
类二十碳烷:合成的前体主要是花生四烯酸
前列腺素:升高体温,促进炎症,控制跨膜转运,调整突触传递,诱导睡眠,扩张血管等
阿司匹林的作用机制:乙酰水杨酸抑制花生四烯酸代谢过程中的环氧化酶(COX),使前列腺素(PG)合成减少
布洛芬是抑制环氧合酶、减少前列腺素合成的非甾体抗炎药。对乙酰氨基酚是另 一种药物,二者不能混写为同义名。
血栓烷(血栓素,如TXA₂):参与血小板聚集及血管收缩。
白三烯:促进趋化性,炎症和变态反应
脂蛋白
种类
Chylomicrons(CM)乳糜微粒(largest and least dense)
VLDL极低密度脂蛋白(very low density lipoprotein)
IDL(intermediate density lipoprotein)
LDL(low density lipoproteins)
HDL(high density lipoproteins)
载脂蛋白(Apolipoprotein)
载脂蛋白含有较多的双性α一螺旋结构,表现出两性,分子的一侧极性较高可与水溶剂及磷脂或胆固醇极性区结合,构成脂蛋白的亲水面,分子的另一侧极性较低可与非极性的脂类结合,构成脂蛋白的疏水核心区
载脂蛋白可参与脂质运输、受体识别或酶活性调节,本身不应统称为酶。
例如ApoC-II是脂蛋白脂肪酶的激活因子;应区分调节蛋白与执行催化反应的酶。
核酸
核酸的化学组成
核糖和脱氧核糖
核糖的构象
RNA核糖通常偏好C3′-endo构象,B-DNA脱氧核糖通常偏好C2′-endo;这是优势构 象,不是绝对限制。
脱氧核糖因为2'位没有氧原子,可以形成2'-endo和3'-endo两种构型。一般在生物体内与水分子作用紧密,显现出2'-endo的构象,对应着B型DNA双螺旋
碱基(Bases)
嘌呤Purine环和嘧啶Pyrimidine环的数字标记
核苷酸衍生物
药用小分子
阿糖胞苷是胞苷类似物;其活性三磷酸形式可干扰DNA合成。结构差异在于糖的 构型,不能简单说成将DNA中的脱氧核糖直接替换。
当腺苷和体内的腺苷受体结合时,就会给大脑传达疲劳的信号。但咖啡因分子非常类似于腺苷,从而代替腺苷和受体结合,从而抑制疲劳的信号产生
有调节功能的核苷酸(第二信使)
与氨基酸一样,碱基在细胞中也受到各种各样的修饰,其产物常常扮演信号传导信使分子、营养因子、辅酶等角色,并对核酸结构的稳定性起着重要作用
tRNA的碱基修饰
DNA的碱基修饰
DNA的结构和功能
查加夫法则(Chargaff rules)
Chargaff规则:双链DNA中A=T、G=C;一般不能直接套用于单链DNA或RNA。
双螺旋的基础—碱基配对
DNA四种碱基之间的氢键
碱基配对时
碱基一般以酮式存在,而不是醇烯式(小于1%)
碱基中的H原子一般不移动,因此很少有亚氨基团
在中性pH条件下,参与氢键的-NH₂基均不带电荷,这是杂环电子共轭以及氢键的共同作用的结果,否则双螺旋结构不会稳定
双螺旋分子中糖分子与纵轴平行,与碱基平面垂直
碱基堆积由多种相互作用共同稳定,包括范德华作用及溶剂效应;不能仅归结为 氢键或单一疏水作用。
B-DNA为右手双螺旋,相邻碱基对间距约0.34 nm,每圈约10—10.5 bp,螺距约 3.4—3.6 nm;数值随条件而变。
双螺旋的直径是2 nm
四种双螺旋
A型拥有较大的宽度与右旋结构,小凹槽较浅且较宽,大凹槽则较深较窄。A型一般存在于非生理状态的脱水样本中,在细胞中则可能为DNA与RNA混合而成的产物
B型与Watson-Crick提出的模型一致,A和C型在低相对湿度的条件下形成,它们的螺距都比B型要短
Z型DNA首先在富含GC的DNA短片段中发现,后用抗体证明天然DNA中也有,它是一 种左旋螺旋,在细胞中可能起着帮助解链和调控基因表达的作用
三股螺旋和四股螺旋
Hoogsteen pairing
核苷的syn/anti描述碱基绕糖苷键旋转形成的构象,不等同于双键的顺反构型。
配对方式
形成三螺旋
四股螺旋
G四联体
i-motif
i-motif由半质子化C·C⁺配对稳定,是一种富C序列可形成的四链结构,其稳定性 受pH与环境影响。
端粒中形成G-四链体和1-motif会阻碍端粒的延长,加速细胞衰老
DNA超螺旋
正螺旋和负螺旋
对共价闭合、无断裂的双链DNA,连接数Lk=Tw+Wr。负超螺旋指相对松弛态ΔLk <0,扭转与缠绕共同分担变化,并不要求每个碱基对解开。
正超螺旋指相对松弛态ΔLk>0。连接数在链不断裂时保持不变;拓扑异构酶可通 过暂时断链改变连接数。
真核生物染色质DNA的折叠
DNA半保留复制
详见分子生物学
RNA的结构和功能
RNA分子
核酸在260 nm处有强吸收,蛋白质常在280 nm处检测;A260/A280仅为纯度的粗 略指标,受pH、污染物及测量条件影响。
RNA分子遇碱极易降解,而DNA则不
tRNA
结构
氨基酸与tRNA的连接分为两个步骤
氨基酸和ATP缩合形成氨基酸与腺苷酸的混合酸酐中间体,然后中间体非共价结合至活性位点
氨酰-tRNA合成酶将氨基酸连接到tRNA的3′端。按结构与催化特征分为两类;酶 的具体数目和底物覆盖随生物类群而异。
两类之间在结构和功能上都有差别,例如I类酶在tRNA的2'-OH上氨基酰化,而Ⅱ类酶通常在3'-OH上氨基酰化
mRNA
修饰
5'帽
pre-mRNA的5'-三磷酸末端被RNA5'-三磷酸酶水解为二磷酸
鸟苷转移酶将 GMP 转移到 5' - 二磷酸的β-磷酸上,形成 5' 至 5'-三磷酸键
真核mRNA的帽结构含N7-甲基鸟苷;cap 1还在第一个转录核苷酸的核糖2′-OH上 甲基化,cap 2再修饰第二个核苷酸。
3'尾
DNA的变性与复性
变性
增色效应(Hyperchromic effect):增色效应指DNA变性后其紫外吸收明显增强的效应
DNA分子中碱基间电子的相互作用使DNA分子具有吸收260 nm波长紫外光的特性。在DNA双螺旋结构中碱基藏入螺旋内侧,变性时DNA双螺旋解开,于是碱基外露,碱基中电子的相互作用更有利于紫外吸收,故而产生增色效应
Tm是DNA热变性过程中达到总增色效应一半时的温度,对应约一半双链结构熔解; 不是吸光度降至一半。
在Tm时,核酸分子内50%的双螺旋结构被破坏。特定核酸分子的Tm值与其G+C所占总碱基数的百分比成正相关
溶液盐浓度越高,DNA结构越稳定,不容易变性
复性
热变性DNA一般经缓慢冷却后即可复性(renaturation),此过程也称为退火(annealing)
复性动力学
复性速率受序列复杂度、浓度、温度和盐浓度影响;Cot曲线常用初始浓度与时 间之积描述复性过程。
DNA测序
PCR
PCR退火温度需结合引物Tm、长度、盐条件及酶体系优化,通常低于引物Tm若干 度;不能统一设为恰好Tm。
详见细胞生物学研究方法
核酸的分离纯化及测定
纯化注意事项
尽量简化操作步骤,缩短提取过程,以减少各种有害因素对核酸的破坏
减少化学物质对核酸的降解,为避免过酸、过碱对核酸链中磷酸二酯键的破坏,操作多在pH4~10条件下进行
许多DNase依赖二价金属离子,可被EDTA抑制;某些常见RNase如RNase A不依赖 金属,但不能把这一点推广到全部核酸酶。
减少物理因素对核酸的降解,物理降解因素主要是机械剪切力,其次是高温。 机械剪切力包括强力高速的溶液振荡、搅拌;细胞突然置于低渗液中造成细胞破裂;DNA样品的反复冻融等。机械剪切作用的主要危害对象是大分子量的线性DNA分子,如真核细胞的染色体DNA等。高温,如长时间煮沸,除水沸腾带来的剪切力外,高温本身对核酸分子中的某些化合键也有破坏作用
纯化的一般步骤
破碎细胞→去除蛋白质、多糖、脂类等生物大分子→沉淀核酸→去除盐类、有机溶剂等杂质→纯化干燥→溶解
真核DNA与核蛋白共存,核蛋白溶于水或高盐溶液(1mol/L NaCl),但不溶于低盐溶液(0.14 mol/LNaCl)
去除蛋白质:水饱和酚,氯仿异戊醇
核酸可用盐与乙醇沉淀,常加入约2—2.5倍体积无水乙醇;70%乙醇通常用于洗涤 沉淀,具体条件随方法而异。
凝胶电泳,根据分子量大小选择介质材料和浓度
核酸染色与检测
溴化乙锭Ethidium bromide能插入DNA分子的碱基对间形成复合物,在紫外线照射下溴乙锭发橘红色荧光,荧光强度与DNA含量成正比
Southern/Northern Blot,FISH等方法鉴定
DNA突变
胞嘧啶脱氨基
胞嘧啶C脱氨基变成尿嘧啶U,在哺乳动物细胞中平均每天发生100次,而腺嘌呤和鸟嘌呤的脱氨基要慢100倍
尿嘧啶在DNA中会被修复系统更正,未修复的U在复制时与A配对,而不是G,导致变异(C→T)
其他脱氨基形式
DNA中腺嘌呤脱氨可形成次黄嘌呤,倾向与C配对;tRNA中的肌苷可在摆动位置识 别多种碱基,属于另一语境。
亚硝酸是碱基脱氨的有效催化剂
烷化剂(Alkylating agents)
硫酸二甲酯介导的鸟嘌呤甲基化
尿嘧啶不稳定性
尿嘧啶容易发生包括氧化、硝化和烷基化的反应
尿嘧啶经历互变异构
UV损伤:TT二聚体和光产物
维生素和辅酶
维生素概论
Vitamins
维生素是维持正常代谢所需的少量有机物,通常须由膳食供给;人体可合成部分 维生素或其前体,但供给量未必满足需要。
最早分离的Vit B₁是一种胺类化合物(硫胺素),称它们为生命胺(Vitamine)(维他命),而许多维生素并非胺类,Vitamine→Vitamin(维生素)
维生素不提供主要能量,也不是机体的主要结构材料;主要参与代谢调节及特定 生理过程。
许多水溶性维生素是辅酶的前体,但并非所有维生素均经磷酸化发挥作用;辅酶 在反应循环中可再生。
与辅酶不同,辅基会紧紧结合在酶上,且不会在反应中被消耗。辅基包含有钼蝶呤、硫辛胺和生物素
脂溶性维生素
维生素A
化学名称是视黄醇(Retinol),是一个具脂环的单元醇,由四个异戊二烯单位组成,五个共轭双键
主要有A₁和A₂两种形式,前者在海水鱼肝脏内较多,后者在淡水鱼肝脏内较多,A₁活性较A₂为大。β-胡萝卜素的结构与Vit A非常相似,1分子胡萝卜素可转化为2分子Vit A。Vit A易被氧化,遇热或光更易氧化
合成视紫红质rhodopsin
功能
组成视紫红质
维生素A的衍生物全反式视黄酸维持上皮细胞正常结构和功能
促进粘多糖合成及骨的形成和生长等
Vit A缺乏症包括:视紫红质合成减少,对弱光敏感性降低(夜盲症)、眼角膜和结膜表皮细胞退变(干眼症)、皮肤和各器官表皮角质化(蟾皮病)
维生素A缺乏可影响上皮分化,导致角化、眼部病变及免疫功能异常;不能写成 缺乏必然发展为癌。
增强体液与细胞免疫功能
维生素A源—β-胡萝卜素是抗氧化剂,包含多个共轭双键。这种共轭双键体系能够通过电子离域作用稳定自由基,中断自由基链式反应,可以消除自由基,防止自由基过氧化作用带来的危害
视黄酸参与细胞分化和基因表达调控;某些维甲酸类药物具有特定治疗用途,不 代表维生素A补充剂能够普遍逆转癌细胞。
维生素D
维生素D₂和D₃是前体形式;经肝脏25-羟化及主要在肾脏进行的1α-羟化,形成有 活性的1,25-二羟维生素D。
植物和真菌
人类皮肤
缺乏维生素D可使儿童发生佝偻病,使成人发生骨软化症。
来源:鱼油、肝、蛋类等动物性食物
可以从胆固醇合成:
在体内的作用方式和类固醇激素类似
活性维生素D与VDR结合,调节靶基因转录,促进钙磷稳态;不能把涉及某疾病的 分子通路直接等同于补充剂的临床疗效。
维生素D与糖代谢存在关联,但不能笼统宣称补充维生素D可预防或治疗糖尿病; 效果与人群、基线状态及研究条件有关。
维生素E
化学名称为生育酚(tocopherol)
H.M.Evans(1922)和他的同事饲养大白鼠,发现受孕雌鼠都有死胎并被吸收掉的现象,饲料中加入少量生菜、麦胚和干苜宿后即可正常生殖,后来提取纯化到Vit E,并实现了人工合成
天然维生素E包括α、β、γ、δ四种生育酚及对应的四种生育三烯酚;α-生育酚是 满足人体维生素E需要的主要形式。
维生素E是脂溶性抗氧化物,参与保护膜脂免受脂质过氧化损伤。
油状物,紫外及氧化剂可使其失活,无氧条件下耐热
因易氧化可用于保护其他物质不被氧化,常被用于保护脂质和VitA不被氧化
氧化应激涉及活性氧产生与抗氧化防御失衡;体外抗氧化作用不能直接证明补充 维生素E可预防癌症。
维生素E缺乏需纠正,但不能把常规补充维生素E概括为已证实的保胎或不孕症治 疗。
抗氧化作用与临床证据
大型随机试验未证明维生素E补充剂能够普遍预防癌症;SELECT试验中,单独补 充维生素E反而增加了前列腺癌风险。
硒或维生素E的生化功能不能推导出“联合服用即可抗癌”;补充剂的效果与风险 需以人群临床试验为依据。
Vit E与Vit C的协同作用,能更有效地阻止咸肉、香肠、火腿等食物中的亚硝酸盐在胃中形成致癌物亚硝胺。Vit C作用于瘦肉部分,Vit E作用于肥肉部分
维生素K
VitK有K₁和K₂两种(K₃和K₄为人工合成),都是2-甲基-1,4萘醌的衍生物。丹麦科学家HDAm(1929-1935)在实验鸡群中发现,命名为血凝维生素
作用
凝血作用、抗出血不凝
维生素K参与特定蛋白质中Glu残基的γ-羧化,帮助形成可结合Ca²⁺的Gla残基, 而非直接催化凝血蛋白的合成。
维生素K在人类的主要作用是作为γ-谷氨酰羧化酶反应的辅因子;某些细菌以甲 萘醌参与电子传递,不应与人体线粒体辅酶Q混淆。
肝、鱼、肉、蔬菜等丰富,遇光易氧化
结构
分子机制
羧化作用是蛋白质的谷氨酸残基羧基化为γ-羧基谷氨酸的一种翻译后修饰方式
羧化由γ-谷氨酰羧化酶执行,需要持续性地以维生素K作为辅助因子才能进行羧化作用
维生素K依赖性γ-羧化涉及凝血因子II、VII、IX、X以及蛋白C、S等;凝血因子I 不是这一组的典型成员。
水溶性维生素
维生素B1和硫胺素焦磷酸
R.R.Williams等于1936年测定结构,1937年实现人工合成。由一个含硫的噻唑环和一个含氨基的嘧啶环组成,故得名。体内以磷酸酯(TP)或焦磷酸酯(TPP)的形式存在
TPP是糖代谢中两个重要脱氢酶的辅酶,参与丙酮酸和α-酮戊二酸氧化脱羧及醛基转移反应,对维持正常糖代谢极其重要
典型的由TPP催化的反应
由于维生素B₁和糖代谢关系密切,因此多食糖类食物,维生素B₁的需要量也相应增多。当维生素B₁缺乏时,糖代谢受阻,丙酮酸积累,使病人的血、尿和脑组织中丙酮酸含量增多,出现多发性神经炎、皮肤麻木、心力衰竭、四肢无力、肌肉萎缩及下肢浮肿等症状,临床上称为脚气病
注意辨析
足癣(tinea pedis,俗称脚气)由真菌感染引起;它与维生素B₁缺乏所致的脚 气病(beriberi)不是同一种疾病。
脚气病,英文Beriberi,是维生素B1(硫胺素)缺乏导致的,可以致命
维生素B₁的主要辅酶形式是TPP,参与α-酮酸氧化脱羧及转酮醇酶反应;缺乏可 损害神经与心血管功能。
维生素B2和黄素辅酶
Vit B₂又称核黄素(riboflavin),为核(糖)醇和6,7-二甲基异咯嗪[luòqín]的缩合物,分子中1、10位N有两个活泼的共轭双键,易起氧化还原反应,反应中起递氢作用
缺乏,组织呼吸减弱、代谢降低,表现为口角炎、舌炎、皮脂溢出性皮炎和视觉模糊等
广泛存在于动植物中,米糠、酵母、肝、蛋黄中丰富
结构
在体内转化为活性磷酸化代谢物FMN(Flavin Mononucleotide,黄素单核苷酸)和FAD(Flavin Adenine Dinucleotide,黄素腺嘌呤二核苷酸),是氧化还原酶(黄素蛋白,flavoprotein)的辅基
以FAD为辅基的酶很多,如琥珀酸脱氢酶、脂酰CoA脱氢酶、D-氨基酸氧化酶、D- 葡萄糖氧化酶
FMN是某些氧化还原酶的辅基,如呼吸链复合物I;FAD也是核黄素衍生的辅酶。
参与碳水化合物、蛋白质和脂肪的代谢,维持正常的视觉功能,促进生长
缺乏症
与眼疾、皮肤异常、睾丸发育不全有关
食管癌高发区林县,饮食中维生素A和维生素B₂的水平有很大差别,B₂水平越低,食管癌发病率越高
核黄素来源包括奶类、蛋、肉及部分蔬菜。缺乏可出现口角炎等表现,但这些症 状并不特异,不能单凭症状确诊缺乏。
维生素B₃/PP和烟酰胺辅酶
又称Vit PP,或抗糙皮病(癞皮病)维生素,是含N杂环吡啶,体内主要以烟酰胺形式存在
两种形式均具有活性:游离酸(烟酸)和酰胺(烟酰胺)
烟酰胺具有很好的护肤功效
烟酰胺是Co I 和Co Ⅱ的组成成分,Co I为烟酰胺腺嘌呤二核苷酸(Nicotinamide Adenine Dinucleotide,NAD)、CoⅡ为烟酰胺腺嘌呤二核苷酸磷酸(Nicotinamide Adenine Dinucleotide phosphate,NADP)。生物体脱氢酶类的辅酶,起携带和传递氢的作用
来源:器官肉(最大来源)、鱼、酵母、干果、坚果、谷物、一些蔬菜
作用
烟酸缺乏可致糙皮病(pellagra),典型表现为皮炎、腹泻、痴呆,重症可致死 亡。犬的黑舌病是相关的动物缺乏病。
NAD⁺除参与氧化还原外,也是PARP等酶的底物,参与DNA损伤应答等过程;动物 或细胞研究不能直接外推为治疗效果。
玉米中部分烟酸处于不易利用的结合形式,且色氨酸含量较低;碱处理可提高烟 酸利用率。
维生素B₅/泛酸和辅酶A
又名遍多酸,意为“到处都有”,也称Vit B₅
由二羟基二甲基丁酸(泛解酸pantoic acid)和β-丙氨酸通过酰胺键结合而成
各种动植物、细菌、酵母和人类生长所必需,但植物和许多微生物能合成泛酸
缺乏时会导致肠胃炎症和皮肤角质化,蜕皮,脱毛等
一种黄色粘性油(游离酸)
对湿热稳定(对干热不稳定),对氧化和还原剂稳定
在酸性或碱性介质中水解
来源:肝脏、肾脏、鸡蛋、瘦牛肉、牛奶、糖蜜、卷心菜、花椰菜、西兰花、花生、红薯、羽衣甘蓝
结构
泛酸参与构成CoA,也参与形成酰基载体蛋白的4′-磷酸泛酰巯基乙胺辅基。
CoA携带酰基;乙酰CoA连接糖、脂质及部分氨基酸代谢。氨基酸碳骨架也可经丙 酮酸或TCA中间物进入代谢,不都先变成乙酰CoA。
维生素B₆和磷酸吡哆醛/胺
维生素B7/生物素和辅酶生物胞素
对一些微生物如酵母、细菌的生长有强烈的促进作用。生物素(Biotin)与细胞内的CO₂固定或羧化作用有关,是很多需要ATP的羧化酶的辅基,起羧基的载体作用
维生素B9/叶酸和四氢叶酸
结构
蓝色为是一碳单位的结合位点
四氢叶酸是体内一碳单位转移酶的辅酶!
案例1:U和T就差了一个甲基
同型半胱氨酸经再甲基化生成甲硫氨酸;这里不是半胱氨酸与甲硫氨酸只差一个 甲基。
最右侧:植物:γ-肽键相连的多谷氨酸;牛奶和蛋黄:单谷氨酸
维生素B₁₂包括多种钴胺素;甲基钴胺素与腺苷钴胺素是体内主要辅酶形式,氰 钴胺素是常见制剂形式之一。
结构
维生素B₁2催化的变位反应
物质代谢与生物能学
新陈代谢总论,生物能学
新陈代谢的基本概念和原理
分解代谢 (catabolism),也称异化作用 (disassimilation)
分解有机物 (糖、脂和蛋白质),转化为更小、 更简单的终产物 (如乳酸、CO2和NH3等),释放能量,部分被转化为 ATP和还原的电子载体 (NADH,NADPH和FADH2),其余的作为热 量散失
合成代谢由较简单前体构建脂质、多糖、蛋白质和核酸等,通常消耗ATP;还原 性合成常主要使用NADPH。
合成代谢 (anabolism),也称同化作用 (assimilation)
高能生物分子
ATP和磷酸酐类 (Phosphoanhyride)
许多激酶依赖Mg²⁺或Mn²⁺与ATP形成复合物;具体金属需求由酶决定。
ATP 末端焦磷酸键的水解和醇解机制
ATP水解的有利因素包括产物的共振稳定、较充分水合及静电排斥减弱等;实际 自由能还取决于ATP、ADP、Pi浓度与环境。
所谓“高能键”不是“键本身能量高”,而是“断裂并重新成键后,整个体系能量降得多”
烯醇磷酸 (phosphoenol):PEP
混合酐 (mixed anhydride):1,3-BP-甘油酸
磷酸胍类 (phosphoguanidine):磷酸肌酸
另有高能硫酯键 (thioester):乙酰CoA、脂酰CoA等
六碳糖的分解和糖酵解作用
生物氧化
生物氧化 (Biological Oxidation)
生物氧化是细胞中物质失去电子的过程,可与电子载体还原及能量转化耦联;并 非每一步都把底物完全氧化成CO₂和H₂O。
参与生物氧化的酶类
传递体 (Carrier)
NAD⁺、FAD等作为氧化还原辅酶携带电子;电子传递链还包括含辅基的酶复合物 及可移动载体。
NAD+或NADP+以及FMN或FAD
脱氢酶 (Dehydrogenase):使代谢物的氢活化、脱离,并将之传递给其它受氢体或传递体
烟酰胺[吡啶]脱氢酶类
NAD⁺接受氢负离子当量形成NADH,改变的是烟酰胺环的电子结构;不能用环氮从 +5价变成+3价解释。
黄素酶类
氧化酶 (Oxidase):生物氧化中,以氧直接为受氢体的氧化还原酶类称为氧化酶
加氧酶 (Oxygenase):催化加氧反应的酶,将氧原子从氧气中引入生物分子,包括单加氧酶和双加氧酶
生物体选择脱羧方式取决于代谢需求
直接脱羧
糖酵解与酒精发酵
糖酵解在有氧和无氧条件下均可进行,是否继续经线粒体氧化取决于细胞类型与 条件。
酒精发酵:丙酮酸先脱羧形成乙醛和CO₂,乙醛再被NADH还原为乙醇,同时再生 NAD⁺。
红细胞、肌肉等组织或微生物在无氧或暂时缺氧条件下,酵解中生 成的NADH+H+用于把丙酮酸→乳酸,称为乳酸发酵
通过该途径,1分子葡萄糖转换为2分子Pyr, 同时净生成2分子ATP和2分子NADH
糖酵解的全过程图解
Preparatory Phase
己糖激酶(hexokinase)需要Mg²⁺或其它二价阳离子及ATP,反应不可逆 / 是酵解 过程的第一个别构[调节]酶,肌肉中受产物G-6-P强烈别构抑制。 / 肝脏中主要 是以葡萄糖激酶(glucokinase)催化此反应,对Glc有特异活 / 性,不受G-6-P的抑 制
磷酸己糖异构酶(PHI),常称为葡萄糖-6-磷酸异构酶 (Glucose-6-Phosphate Isomerase,GPI)
血清或血浆GPI活性升高可提示细胞损伤,但缺乏组织特异性,不能仅凭这一指 标确定损伤部位或疾病。
PFK-1
磷酸果糖激酶 (phosphofructokinase, PFK),需要Mg2+及ATP,是糖酵 解途径的关键反应酶 (committed step, key reaction, rate-limiting reaction),酵解进行的速度取决于该酶的活性
醛缩酶 (aldolase)
磷酸丙糖异构酶 (Triose-phosphate isomerase, TPI或者TIM)
在反应中形成的磷酸烯二醇中间物若离开酶分子,在溶液中很容易释放出磷酸 根生成丙酮醛
磷酸丙糖异构酶的活动环在催化过程中关闭以隔离活性中心,产物释放时再打开; 不是该环结构消失。
Payoff phase
3-P-甘油醛脱氢酶 (glyceraldehyde-3-phosphate dehydrogenase, GAPDH)
磷酸甘油酸变位酶 (phosphoglycerate mutase)
催化磷酸基团在C3和C2 位可逆变位,Mg2+对反应为必需
Rapoport Luebering Cycle , R-L循环 (合成2,3-bisphosphoglycerate)
负电荷的BPG和两个β链之间的正电荷氨基酸通过离子键结合,有助于 稳定T态血红蛋白构象,促进氧的释放。R态血红蛋白中,中央空穴变 得太小,容纳不了BPG
红细胞的Rapoport–Luebering旁路绕过磷酸甘油酸激酶步骤;每分子1,3-BPG经 该旁路少生成1 ATP。若两个三碳单位均绕行,糖酵解的净ATP收益可降为0。
丙酮酸激酶(pyruvate kinase)
葡萄糖转变为丙酮酸的能量转变
无氧条件下,丙酮酸转变为乳酸
无氧条件下,丙酮酸转变为乙醛,进而生成乙醇。
有氧条件下,丙酮酸氧化脱羧生成乙酰-CoA,进入三羧酸循环,氧 化供能(乙酰-CoA在能量状态高的情况下可用于合成脂类物质)
丙酮酸可作为Ala、乙酰CoA及草酰乙酸等物质的合成前体,并由此连接脂肪酸、 胆固醇等代谢。
丙酮酸的去路
糖酵解作用的调节
糖酵解的总结
不可逆的步骤
与ATP生成有关
与NADH生成有关
需要镁离子
ATP相关+
特殊抑制剂
2-脱氧-6-磷酸葡糖
与酶的活性中心结合,但由于不 能形成烯二醇中间物,所以无 法完成反应,反而因为占据活 性中心而抑制酶的活性
ICH2COOH
活性中心在酶的Cys-SH上,ICH2COOH与-SH反应,可强烈抑制酶的活性
砷酸(盐)
砷酸(盐)与磷酸结构相似,起着解偶联的作用,解除了氧化和底物水 平磷酸化的偶联作用,其他涉及到Pi作为反应物的
F-
氟化物可在Mg²⁺与磷酸参与下抑制烯醇化酶;这一作用不应误写为糖酵解中TIM 的常规抑制机制。
特殊激活剂
果糖-2,6-二磷酸
果糖-1,6-二磷酸
其它六碳糖进入糖酵解途径
D-Fructose
通过hexokinase转变为F-6-P进入EMP,但酶对Glc的亲和力大于对Fru 的12倍,肝脏中几乎不发生这种反应,而脂肪组织中则Fru > Glc, 可走这一途径
3-磷酸甘油醛(GAP)经GAPDH氧化并结合无机磷酸,形成1,3-二磷酸甘油酸;不 要与3-磷酸甘油酸混淆。
磷酸果糖激酶,限速步骤,受ATP抑制
果糖激酶,不受ATP抑制
D-Mannose
甘露糖先磷酸化为甘露糖-6-磷酸,再由磷酸甘露糖异构酶转变为果糖-6-磷酸, 进入糖酵解。
D-Galactose
由galactokinase催化生成1-P-Gal,再由尿苷酰转移酶催化与 UDP-Glc反应生成Glc-1-P和UDP-Gal
UDP-Gal由差向异构酶催化变为UDP-Glc,完成再生
而G-1-P经变位酶催化变成G-6-P进入EMP
经典半乳糖血症通常由GALT基因致病变异导致酶活性缺陷,不一定是整个基因缺 失。
柠檬酸循环
丙酮酸转化为乙酰CoA的过程
丙酮酸脱氢酶-复合物(或系) Pyruvate dehydrogenase complex (PDC)
丙酮酸脱氢酶[E1]
二氢硫辛酸转乙酰酶[E2]
二氢硫辛酸脱氢酶[E3]
丙酮酸脱氢酶复合物催化5步反应
丙酮酸脱羧生成羟乙基-TPP
二氢硫辛酰转乙酰酶催化羟乙基TPP氧化为乙酰基,并转移给硫辛酰胺变乙酰硫辛酰胺
二氢硫辛酰转乙酰酶催化乙酰硫辛酰胺上的乙酰基转移给CoA生成乙酰CoA
二氢硫辛酰脱氢酶催化还原的硫辛酸再氧化 ,并将氢交给FAD生成FADH2-E
FADH2使NAD+还原
丙酮酸脱氢酶复合物 (PDC) 的调节
可逆磷酸化作用的共价调节 (reversal phosphorylation covalent regulation):ATP过量时,Py脱氢酶[E1]酶分子上多个Ser位点的OH被 蛋白激酶催化磷酸化,导致[E1]酶对底物的亲和力降低,以及催化位 点结构和动态的扰动,从而失去活性,一旦磷酸基团被磷酸酯酶催化 水解[去磷酸化]可恢复活性
Ca2+激活:Ca2+通过激活磷酸酶的作用,使丙酮酸脱氢酶活化, insulin也可刺激去磷酸化作用
柠檬酸循环
柠檬酸合(成)酶 (Citrate Synthase)
柠檬酸合酶生成柠檬酰CoA后,再水解为柠檬酸放能,致使反应不可逆
柠檬酸合酶是TCA的一个调节酶,活性受ATP、NADH、Succinyl CoA 及长链脂酰CoA的抑制,对于TCA是一个限速步骤
顺乌头酸酶 (aconitase)
异柠檬酸氧化脱羧生成α-酮戊二酸
α-酮戊二酸氧化脱羧
α-酮戊二酸可以理解为丙酮酸的衍生物
TCA的底物水平磷酸化
琥珀酸脱氢生成延胡索酸
延胡索酸水合形成L-苹果酸
L-苹果酸氧化再生草酰乙酸
三羧酸循环总结
涉及到NADH的
异柠檬酸 + NAD⁺ → α-酮戊二酸 + 二氧化碳(CO₂) + NADH + 氢离子(H⁺)
α-酮戊二酸 + 辅酶A(CoA) + NAD⁺ → 琥珀酰辅酶A(Succinyl-CoA) + 二氧化碳(CO₂) + NADH + 氢离子(H⁺)
L-苹果酸 + NAD⁺ → 草酰乙酸(OAA) + NADH + 氢离子(H⁺)
涉及到GTP的
琥珀酰辅酶A(Succinyl-CoA) + 磷酸(Pi) + GDP → 琥珀酸 + GTP + 辅酶A(CoA)
涉及到FADH2的
琥珀酸 + FAD(酶结合型) → 延胡索酸 + FADH₂(酶结合型)
不可逆反应
乙酰辅酶A(Acetyl-CoA) + 草酰乙酸(OAA) + 水(H₂O) → 柠檬酸 + 辅酶A(CoA) + 氢离子(H⁺)
α-酮戊二酸 + 辅酶A(CoA) + NAD⁺ → 琥珀酰辅酶A(Succinyl-CoA) + 二氧化碳(CO₂) + NADH + 氢离子(H⁺)
特殊抑制剂
氟乙酰CoA (氟乙酸、氟乙酸钠、氟乙酰胺)
柠檬酸 → 顺乌头酸 + 水(H₂O)
氟乙酰CoA可与草酰乙酸缩合生成氟柠檬酸;后者通过顺乌头酸酶相关反应产生 强抑制作用,阻碍TCA,不能解释为酶完全不识别它。
氟柠檬酸及其在顺乌头酸酶作用下形成的抑制性产物,可阻断顺乌头酸酶反应并 严重干扰能量代谢。
致死(性)合成,是指与细胞正常代谢物结构相似的外来化合物,参与 代谢过程,生成高毒性的、可导致细胞死亡的合成代谢,是一种特殊 类型的化学损害。在代谢研究的应用上,被广泛用于杀虫剂、灭鼠药 及化疗药物的生产
丙二酸
琥珀酸 + FAD(酶结合型) → 延胡索酸 + FADH₂(酶结合型)
丙二酸与琥珀酸结构类似
砷化物
α-酮戊二酸 + 辅酶A(CoA) + NAD⁺ → 琥珀酰辅酶A(Succinyl-CoA) + 二氧化碳(CO₂) + NADH + 氢离子(H⁺)
与硫辛酸的两个 –SH 同时形成稳定配位
柠檬酸循环在代谢中的双重角色
两用代谢途径(amphibolic pathway)兼有分解与合成作用,例如TCA既氧化乙 酰CoA,也为多种生物合成提供中间物。
乙醛酸循环
微生物和植物可以在产乙酸或产生acetyl-CoA的化合物中生长,因为 / 它们存 在两种酶:异柠檬酸裂解酶(isocitrate lyase)和苹果酸合酶 / (malate synthetase),这样可使TCA循环中的异柠檬酸不经脱羧而被酶 / 裂解为琥珀酸 和乙醛酸,乙醛酸与另一分子acetyl-CoA在苹果酸合成 / 酶作用下缩合形成苹 果酸
意义:连接糖与脂的相互转变;协同TCA,造成C4的赢余,实现回 补或生糖
在植物细胞中,乙醛酸途径是在线粒体和植物特有的细胞器乙醛酸循环 体中进行的,它是一种特化的过氧化物酶体(peroxisome)
氧化磷酸化作用
氧化还原电势
在线粒体电子传递链中,电子是从“低(更负)的标准还原势”载体,依次流向“高(更正)的标准还原势”载体
ΔG°′=−nFΔE°′<0
E°′ 越负 → 越不愿被还原(电子“能级高”,容易给出去)
E°′ 越正 → 越容易被还原(电子“能级低”,容易被接收)
电子传递链
铁硫中心 (Iron-sulfur Center)
铁硫中心 (Iron-sulfur Center) 也可称铁硫簇 (Iron-sulfur cluster) , 一般简写为Fe-S,是自然界中最为常见的辅助因子之一
Fe-S中心与蛋白质相结合形成铁硫蛋白,又称非血红素铁蛋白 (nonheme iron proteins) ,也构成了金属蛋白的最大家族
最早由Helmut Beinert发现,铁与无机硫原子和/或蛋白质Cys残基的 硫原子相连。铁硫中心 (Fe-S) 最简单的是单个铁原子与4个Cys的- SH相连,更复杂的是有2个或4个铁原子
铁硫簇可参与电子传递,也可承担催化或感应调节功能,不能全部归为单纯电子 载体。
Rieske铁硫蛋白:复合物 III 功能所必需的
辅酶Q (Coenzyme Q,CoQ)
又称泛醌 (Ubiquinone, UQ) ,脂溶性醌类化合物,有一个长的异戊 二烯侧链,因广泛存在得名。在呼吸链中是掺入到线粒体内膜的电 子载体
CoQ不仅接受NADH-Q还原酶的e和H+,还接受线粒体其它脱氢酶的 e和H + ,如琥珀酸-Q还原酶,脂酰CoA-Q还原酶的e和H + ,在电子传递链中处于中心地位
CoQ在呼吸链中接受黄素酶的e和H + ,本身被还原为泛醇,再把电 子传递给Cyt体系被氧化,接受1e变为自由基泛半醌,接受2e变为泛 醇 (QH2)
细胞色素类 (Cytochromes)
细胞色素是含铁的电子传递体,铁原子处于卟啉结构中心,构成血 红素(heme)。细胞色素类都以血红素作为辅基,使这类蛋白质呈现 红色或褐色。细胞色素类在呼吸链中将电子从辅酶Q传递到O2
每一种细胞色素都有特殊的光吸收。它们的还原型通常具有α、β和γ / 三个吸收 峰。根据吸收光谱将它们分成a、b、c三类。线粒体的电子 / 传递链至少含有5 种不同的细胞色素:b、 c1、 c、a、a3
氧化呼吸链
复合体I: NADH-CoQ还原酶
复合体I的抑制剂
总的来说是泛醌的类似物,最重要的是rotenone鱼藤酮
复合体II: 琥珀酸-CoQ还原酶
复合物II即琥珀酸脱氢酶,是TCA中与线粒体内膜结合的酶;在人类,其亚基均 由核基因编码,且不直接泵出质子。
复合体III: 细胞色素还原酶
又称Cyt bc1复合体或辅酶Q-细胞色素c氧化还原酶。偶联催化电子由 QH2到Cyt c的转移和质子由膜内基质向膜外空间的运输
复合物III是一个由相同单体组成的二聚体,每个单体含有11个不同 的亚基
复合物III的核心包括含血红素bL、bH的细胞色素b、Rieske 2Fe–2S蛋白及细胞 色素c₁;c₁再把电子传给可移动的细胞色素c。
复合物有两个泛醌结合位点QN (泛醌Q还原位点,quinone reduction site, 也叫Qi, inner side) 和 QP (泛醇QH2氧化位点,quinol oxidation site,也叫Qo , outer side) 。单体间的界面形成两个口袋,每个口袋含 来自1个单体的QP和另一个单体的QN。泛醌在这些掩蔽的袋中移动
Q循环
本质上其实就是解决Fe-S蛋白一次只能接受一个电子的问题,净效应是进来两个QH2,生成了一个QH2,里外里就是一个QH2把两个电子转移给细胞色素C
复合体IV:细胞色素氧化酶
又称细胞色素c氧化酶,呼吸链的最后一步,把Cyt c的电子转移给O2, 生成H2O
复合物IV的亚基II含双核CuA中心;亚基I含血红素a,以及血红素a₃—CuB双核催 化中心。CuA中心含2个铜,不是2个独立CuA中心。
电子由细胞色素c依次传至CuA、血红素a及血红素a₃—CuB中心,最终还原O₂。每 转移4 e⁻,基质侧消耗4个化学质子生成2 H₂O,并另泵出约4 H⁺。
超复合体以及呼吸体 (respirasome)
电子传递顺序的证据
从NADH到O2,每一电子传递体的氧化还原电势逐步增加
bc1其实是分开来的,b是回流那一路,c1就是一路向下
能阻断呼吸链某一部位电子传递的物质为电子传递抑制剂。利用专 一性电子传递抑制剂选择性地阻断某个传递过程,再测定链中各组 分的氧化-还原态情况,是研究电子传递顺序的有效的重要方法
鱼藤酮(rotenone)、安密妥(amytal)、杀粉蝶菌素A(piericidinA) 阻断电子由NADH向CoQ的传
抗霉素A (antimycin A) 通过结合在Qi位点,抑制了泛醌的还原
氰化物 (cyanide, CN-) 、硫化氢、叠氮化物 (azide N3-) 、CO等,阻 断电子由Cyt aa3到氧的传递
植物呼吸链的几条支路—末端氧化酶系统
交替氧化酶 (alternative oxidase,AOX) 也称抗氰氧化酶 (cyanideresistant oxidase) 。它广泛存在于高等植物及部分真菌和藻类中,是植物体线粒体内膜上的线粒体呼吸链中抗氰呼吸途径 (cyanide-resistant respiration pathway) 的末端氧化酶
氧化磷酸化作用
化学渗透假说 (Chemiosmotic hypothesis)
电子传递的结果把H+从线粒体内膜基质泵到膜外空间,形成一个跨 线粒体内膜的H+梯度,其中所含的化学渗透能正是促进ATP合成所 需能量,这种能量被称为质子推动力或质力 (Proton-Motive Force, PMF)
由化学势能差和电势能差共同产生
ATP合成酶 (ATP synthase)
位于线粒体内膜的内表面,又称F1/Fo-ATP合成酶
F₁含α₃β₃催化头部等亚基,主要催化位点位于β亚基;旋转轴驱动不同催化构象 转换。
F的下标“1”表示这是从线粒体中分离出的第一个因子,因为它是 容易分离的外周蛋白
Fo横贯内膜,含有质子通道,由多种亚基组成
F。的下标不是数字“0”,而是字母“o”,表示它被药物 Oligomycin(寡霉素)抑制
Boyer机制 (binding change mechanism)
人类ATP合酶F₀的c环含8个c亚基;质子转运驱动旋转,F₁每完整旋转一圈可合成 3个ATP。c环亚基数不等于F₀全部亚基数。
细胞质获得ATP还涉及磷酸向基质输入及ADP/ATP交换的能量成本。常用近似P/O 比:NADH约2.5,琥珀酸/FAD途径约1.5;不要把每ATP的质子成本视为严格不变 整数。
F1的催化机制
穿梭系统
NADH本身不能自由穿过线粒体内膜;穿梭系统转移的是还原当量。不同穿梭途径 进入呼吸链的位置不同。
甘油磷酸穿梭 (Phosphoglycerol Shuttle):骨骼肌,步骤少,速度快
苹果酸-天冬氨酸穿梭(Malate-Aspartate Shuttle):心脏,肝脏,肾脏,脑,步骤多,涉及多个载体和转膜蛋白,速度相对较慢,但能量效率高
影响氧化磷酸化作用的因素
ADP-Pi、ATP的调节作用
激素的调节作用
Thyroxine→ (+) Na+/K+-ATPase, 加快 ATP→ADP+Pi, ADP进入 线粒体的数量增加,氧化磷酸化加快,耗氧及产热增多—甲状 腺机能亢进 (hyperthyroidism) ,患者BMR (basal metabolic rate) 增高
解偶联剂 (uncoupler) 的作用,如2,4-dinitrophenol (DNP) ,解 除偶联作用
解偶联蛋白 (Uncoupling proteins, UCPs)
UCP1可使棕色脂肪线粒体质子梯度以产热形式消散;不能把所有UCP家族成员的 生理作用都等同于UCP1。
寡霉素抑制ATP合酶的质子通道;在紧密耦联条件下,质子梯度积累还会间接减 慢呼吸,解偶联后情况不同。
离子载体抑制剂 (ionophores)
呼吸链抑制剂
戊糖磷酸途径
戊糖磷酸支路的氧化阶段
6-磷酸葡萄糖脱氢酶高度严格地以NADP+为电子受体
戊糖磷酸支路的非氧化阶段
酮糖 (ketose) 作为转酮酶 (transketolase) 的底物只有当其C3位羟基的 构型相当于木酮糖C3的构型时才起作用
碳骨架重排
磷酸戊糖途径的总结和意义
意义
产生大量NADPH,为生物合成提供还原力,如脂肪酸合成、固醇合成
产生磷酸戊糖,参与核酸代谢
NADPH 使 红细胞内GSSG→GSH, 对维持红细胞的还原性至关重要
蚕豆病 (Favism) 葡萄糖-6-磷酸脱氢酶缺乏症 (G6PD)
G6PD缺乏使红细胞生成NADPH、维持还原型谷胱甘肽的能力下降;蚕豆中的 vicine、convicine及其活性代谢物可诱发氧化应激和溶血。
糖异生和糖的其它代谢途径
糖异生作用
糖异生 (Gluconeogenesis)
人体肝脏、肾脏及肠上皮细胞中,甘油、乳酸和一些氨基酸等非糖 物质转变为糖原或葡萄糖的过程
哺乳动物糖异生主要发生于肝脏
糖异生的关键在红色标出来的糖酵解的三步不可逆的步骤如何逆向进行
回补反应是第一个,主要解决的是OAA的耗竭问题
丙酮酸羧化酶
6-磷酸葡萄糖去磷酸
葡萄糖的去磷酸化主要发生在肝细胞中,因为肝脏是调节血糖水平的主要场 所。这是糖异生途径的最后一步
葡萄糖-6-磷酸酶系统位于内质网膜,催化位点朝向腔内;G6P需先进入内质网腔, 水解后生成葡萄糖和Pi,再经转运参与血糖维持。
葡萄糖-6-磷酸酶缺乏症 (糖原贮积病Ⅰ型)
丙酮酸生成及异生为糖的能量变化关系
一个葡萄糖分子经糖酵解生成丙酮酸,再经糖异生变回葡萄糖的净效应是:消耗 2 ATP 和 2 GTP(共 4 个 ATP 当量),不产生净还原当量或碳骨架变化,能量以热的形式散失
无效循环 (Futile Cycle)
生物组织内由两个不同的酶催化两个相反的代谢途径,反应的一个 方向需要高能化合物如ATP参与,而另一方向则自动进行,这样循 环的结果只是ATP被水解了,而反应物并无变化,这种循环被称为 “无效循环” (Futile cycle) 或者“底物循环” (substrate cycle)
肝脏中有糖酵解和糖异生的完整酶系,可能存在三种无效循环
意义:产生热能、扩大代谢的调控
2,6-BP是糖酵解/糖异生重要的调节节点
磷酸果糖激酶-2 (phosphofructokinase-2, PFK-2) 和二磷酸果糖磷酸酶-2 (fructose bisphosphatase-2, FBPase-2)由酶分子上一个丝氨酸残基往复地 磷酸化所控制
肝脏中,胰高血糖素经cAMP—PKA通路磷酸化双功能酶,使PFK-2活性降低、 FBPase-2活性增加,F-2,6-BP下降,从而抑制糖酵解、促进糖异生。FBPase-2作 用于果糖-2,6-二磷酸。
饱食时,胰岛素分泌量增加,胰岛素刺激磷酸果糖激酶-2 (PFK-2) 活性, 导致果糖-2,6-二磷酸 (F-2,6-BP) 含量增加。果糖-2,6-二磷酸 (F-2,6-BP) 又能激活磷酸果糖激酶 (PFK-1) 的活性,使糖酵解加速
糖醛酸途径 (Glucuronic Acid Pathway, Uranic Acid Pathway)
肝脏中糖醛酸与药物或含-OH, -COOH, -NH2, -SH等异物结合,随尿、 胆汁排出而解毒
UDP-葡糖醛酸是葡糖醛酸基供体,参与糖胺聚糖等物质的合成及葡糖醛酸化反应。
人类及其他类人猿、猴类不能自行合成维生素C;并非所有灵长类都失去该能力。
形成木酮糖与HMP相联系
糖原的分解和生物合成
糖原利用途径
葡萄糖-1-磷酸参与糖原代谢,也参与半乳糖与UDP-葡萄糖相关代谢,并非只由 糖原分解产生。
糖原的降解
糖原磷酸化酶 (Glycogen Phosphorylase)
糖原磷酸化酶催化直链糖原的分解,从糖原的非还原端断裂α-1,4-糖苷键,生成G-1-P,分解作用可以进行到α-1,6分枝点两侧各余约4个Glc残基 (glucosyl residues),产物为极限糊精和G-1-P
极限糊精
在糖原降解过程中,糖原磷酸化酶只能在非分支区域沿着α-1,4键逐步切断,但遇到分支点(α-1,6键附近)就停下来。当它距离分支点还剩下约4个葡萄糖残基就不能继续了,此时剩下的残基结构就叫极限糊精(limit dextrin),接下来就要靠脱枝酶
糖原磷酸化酶使用磷酸吡哆醛作为辅助因子
糖原磷酸化酶以吡哆醛磷酸 (pyridoxal phosphate, PLP) 为辅酶,它是吡哆醇 (维生素B6) 的衍生物
维生素B6是将葡萄糖从糖原中动员起来所必需的
糖原磷酸化酶在PLP磷酸基参与的酸碱催化下,使无机磷酸进攻非还原端葡糖基 并断开α(1→4)糖苷键。
反应生成葡萄糖-1-磷酸及缩短一个残基的糖原。可用类氧碳正离子的过渡态描 述,不能简单写成游离碳正离子先释放后再结合磷酸。
糖原脱枝酶 (Debranching Enzyme)催化支链的转移和水解
脱支酶先将分支末端的3个葡糖基转移到另一条链,再水解余下的α(1→6)键,释 放游离葡萄糖。
转移酶和去分枝酶是同一个酶上的不同部分[两个活性位点]
糖原的合成
UDP-Glucose 焦磷酸化酶(UDP-Glucose pyrophosphorylase, UGP)
Glc-1-P+UTP→>UDPG+ PPi
糖原合成酶 (glycogen synthase)
糖原合成时,末端葡糖基的C4羟基与UDP-葡萄糖的异头碳形成α(1→4)糖苷键。
UDPG是活泼葡萄糖基的供体,其生成过程中消耗UTP,故糖原合成是耗能过程,糖原合成酶只能促成α-1,4-糖苷键,因此该酶催化反应生成为α-1,4-糖苷键相连构成的直链多糖分子
生糖原蛋白 (Glycogenin)
生糖原蛋白可作为葡萄糖基的受体,从头开始合成第一个糖原分子的葡萄糖,它本身具有自动催化作用 (autocatalysis),合成一寡糖链作为引物,再继续由糖原合成酶催化合成糖原
糖原分支酶 (Glycogen Branching Enzyme)
糖原α-1,6-糖苷键的分支点不是以逐个添加Glc残基的方式合成的,而是糖原分支酶将5-8个葡萄糖残基寡糖直链转到另一糖原支链上以α-1,6-糖苷键相连,生成分枝糖链
在其非还原性末端可继续由糖原合成酶催化进行糖链的延长。多分支增加糖原水溶性有利于其贮存,同时在糖原分解时可从多个非还原性末端同时开始,提高分解速度
糖原代谢的调控
糖原合成酶和糖原磷酸化酶的相互调节
糖原合成酶和磷酸化酶通过磷酸化-去磷酸化相互调节,一个被激活另一个被抑制
脂质的代谢
三酰甘油的消化、吸收和转运
脂肪的消化和吸收
胆汁酸盐乳化脂肪形成混合微团 (mixed micelles)
胆酸是由肝合成,与甘氨酸/牛磺酸结合形成胆汁盐,分泌进胆汁排入到十二指肠内,作为肝消化液的组成部分之一
胆汁盐乳化脂肪油滴
在回肠末端(terminal ileum),约 95% 胆汁盐被主动重吸收,重吸收的胆汁盐经门静脉回到肝脏
胰脂肪酶主要水解三酰甘油的sn-1、sn-3酯键,生成2-单酰甘油和游离脂肪酸, 再经吸收与重酯化。
胰脂肪酶是人体消化系统中负责分解脂肪的主要酶
胆盐乳化脂质,增大脂水界面面积,有利于脂肪酶作用及混合胶束形成。
Orlistat, 奥利司他,脂肪酶抑制剂
膳食三酰甘油消化的主要产物为2-单酰甘油和游离脂肪酸;不能把全部产物概括 为甘油与3分子脂肪酸。
脂肪与胆固醇、apolipoproteins结合形成乳糜微粒 (chylomicrons)
乳糜微粒通过淋巴系统和血液进入组织
ApoC-II激活lipoprotein lipase重新水解脂肪为甘油和脂肪酸
脂肪酸进入细胞
脂肪酸被氧化释放能量,或在肌细胞及脂肪组织中酯化储存
甘油代谢 (Glycerol Metabolism)
能量计算
如果磷酸二羟丙酮进入糖酵解
细胞质内先消耗1 ATP,生成的2 NADH、2 ATP 线粒体内生成4 NADH、1 FADH2、1GTP (ATP),小计生成2 ATP、6 NADH 、1 FADH2
脂肪酸的氧化
发生在肝脏及其他组织的线粒体内
脂肪酸转变为脂酰-CoA
脂酰CoA合酶(acyl-CoA synthase),也称 脂肪酸硫激酶(fatty acid thiokinase)
内质网acyl-CoA synthetase,活化12个碳原子以上的脂肪酸
线粒体acyl CoA synthetase,活化4-10碳原子的脂肪酸
活化为脂酰CoA,水溶性增加,有利于反应进行
β-氧化的酶对脂酰CoA有专一性
脂肪酸通过脂酰肉碱/肉碱运输体进入线粒体
β-氧化
总结
脂肪酸仅需活化一次,消耗1× ATP的两个高能磷酸键(相当于2个ATP),活化的酶在线粒体膜外
Acyl CoA(14C及以上)需经肉碱运输才能进入线粒体内,有肉碱转移酶I和II
脂肪酸β-氧化主要发生于线粒体;过氧化物酶体也参与,尤其处理超长链等特定 脂肪酸。
每轮β-氧化通常生成1 NADH、1 FADH₂当量及1乙酰CoA,脂酰链缩短2个碳;偶数 链的最后一轮生成2个乙酰CoA。β-氧化本身不直接释放CO₂。
能量小结
偶数碳饱和游离脂肪酸完全氧化的ATP估算(采用NADH≈2.5、FADH₂≈1.5;含活化 成本)
不饱和脂肪酸的氧化
不饱和脂肪酸的β-氧化需要辅助酶:烯酰CoA异构酶可形成反式Δ²中间物;多不 饱和脂肪酸还可需2,4-二烯酰CoA还原酶并消耗NADPH。
当遇到Δ3 -顺式
当遇到顺式-Δ4
多不饱和脂肪酸:辅助反应
当遇到Δ3 –反式
反式Δ³烯酰CoA仍须异构化为反式Δ²烯酰CoA,才能进入常规β-氧化水合步骤。
奇数脂肪酸的氧化
奇数碳脂肪酸与偶数碳脂肪酸一样,经多次β-氧化最终产生丙酰CoA /proopai'pnil (propionyl-CoA),剩下的问题就是丙酸代谢
生成琥珀酰CoA进入TCA
奇数链脂肪酸末端的丙酰CoA
通过β-羟丙酸支路,最终生成乙酰CoA进入TCA
过氧化物酶体中的脂肪酸氧化
过氧化物酶体氧化脂肪酸四步反应的第一步黄素蛋白脱氢酶催化脱 氢生成FADH2,电子直接传递给O2生成H2O2,后者被过氧化氢酶分 解解毒
极长链脂肪酸(≥C22)
2-甲基支链脂肪酸如降植烷酸
胆汁酸代谢中间物如三羟胆甾烷酸、多不饱和脂肪酸、长链二羧酸、二 十烷类物质(如前列腺素、血栓素、白三烯)
脂溶性维生素
一些外源物的侧链等
植物乙醛酸循环体和过氧化物酶体利用β-氧化提供合成前体和能量
植物线粒体中并不含有β-氧化的酶
植物脂肪酸β-氧化主要在线粒体以外的过氧化物酶体进行;萌发油料种子的乙醛 酸循环体是特化的过氧化物酶体,不宜把其出现绝对限定于萌发种子。
植物贮存脂经β-氧化提供乙酰CoA;乙醛酸循环与糖异生可将其碳骨架转为糖, 为幼苗生长提供碳源,相关代谢也参与能量供应。
脂肪酸的α-氧化
α-氧化是指在α-碳上的氧化。这种代谢途径发生在某些因β-碳被封闭 (如连有甲基)而无法进行β-氧化的脂肪酸中
Refsum综合征和植烷酸代谢
发生在线粒体中
脂肪酸的ω -氧化
多发生于动物肝脏和肾脏的内质网中,底物多为12或10碳的脂肪酸。第 一步反应在ω碳上引入羟基,氧来自分子氧,由混合功能加氧酶系统催 化完成,涉及细胞色素P450和电子供体NADPH,还需要醇脱氢酶和醛脱 氢酶的参与
发生在平滑内质网,是一个次要但在病理状态下重要的通路。适用于当 β-氧化受限或饱和时的脂肪酸,尤其是中长链脂肪酸
酮体
酮体 (Ketone Bodies)
人类及大多数哺乳动物,脂肪酸 β-氧化产生大量的乙酰CoA,在肌 细胞中进入TCA,在肝组织中,特别是在饥饿、禁食、糖尿病等情 形下,乙酰CoA可进一步缩合并生成乙酰乙酸、β-羟丁酸和丙酮这三种物质,统称为酮体 (ketone bodies)
酮体包括乙酰乙酸、β-羟丁酸和丙酮;丙酮可溶于水,主要经呼吸排出,并非绝 对不能代谢。
成熟红细胞无线粒体,不能氧化脂肪酸或酮体;脑通常主要利用葡萄糖,长期饥 饿时可增加酮体利用,但仍需一定葡萄糖。
酮体合成
β-羟丁酸作为燃料
酮体代谢的生物学意义
肝脏产生的酮体在肝外组织中被氧化供能,心肌、肾皮质和脑 / 组织等在糖供 应不足时,都可以酮体提供能量
长期饥饿时,脑可显著增加酮体利用;利用比例随饥饿持续时间和生理状态变化, 不能统一写成固定75%。
饥饿或胰岛素严重不足时,脂肪酸分解与酮体生成可增加;草酰乙酸用于糖异生 等因素限制TCA通量,但不等于乙酰CoA完全不能进入TCA。
酮体生成超过利用和排出时会积累;营养性酮症与严重酮症酸中毒应区分。
酮体过量产生
胰岛素不足时,脂解增强、丙二酰CoA下降,CPT-I抑制减弱,脂肪酸进入线粒体 增加;草酰乙酸被用于糖异生等因素限制TCA处理乙酰CoA的能力,促进酮体生成。
脂肪酸/脂肪的生物合成
脂肪酸合成
动物的从头脂肪酸合成主要在胞质进行;植物主要在质体进行,不能统一套用动 物的区室分布。
反应需要
脂酰[基]载体蛋白ACP [acyl carrier proteins]、ATP、CO2、NADPH和 Mn2+等
合成中只有一个C2物/乙酰CoA [二碳]以“引物”参与合成过程,其 余延伸的“C2”物均以丙二酸单酰CoA [三碳]形式参与反应
乙酰CoA由线粒体转运向胞质
丙二酸单酰CoA的合成
乙酰CoA羧化酶,ACC
乙酰CoA羧化酶受柠檬酸、长链脂酰CoA及磷酸化等调节;柠檬酸可促进活化,但 不能说缺少柠檬酸时酶必然完全无活性。
脂肪酸合酶
I型脂肪酸合酶把多种催化活性整合在多功能蛋白复合物中;II型由相对独立的 酶承担各步骤,其酶数目随系统而异。
酰基载体蛋白(acyl carrier protein, ACP)的作用是以硫酯键的形式把 脂酰基团连接在复合物上以代替脂酰CoA形式
脂肪酸的生物合成步骤
启动:乙酰CoA-ACP转酰酶 (AT)
装载:丙二酸单酰CoA-ACP转酰酶 (MT)
缩合:β-酮酰-ACP合酶 (KS)
释放出来的CO2又可被利用合成丙二酸单酰CoA,重复利用
总反应
3-羟脂酰基的羟基是有手性的
β-氧化中的酶具有立体选择性,常识别L-3-羟脂酰CoA;通路方向还由自由能及 代谢物浓度等决定,不能仅由立体选择性保证。
合成与分解采用不同酶、辅酶、载体和细胞区室,并受相互协调的调节,共同减 少无效循环。
延伸[长]合成[elongation synthesis]: 存在于线粒体和内质网中—线粒体系统和内质网系统
线粒体系统
线粒体的基质中进行的延伸合成,只能在C12、C14、C16的基础上逐步 添加C2物,生成延长碳链的长链脂肪酸
反应基本上是β-氧化的逆过程,只有个别反应不同,即脂酰CoA脱 氢酶不参与逆反应,合成时由烯脂酰CoA还原酶催化,需NADPH而 不是FADH2
内质网系统参与不饱和脂肪酸生物合成
脂肪合成
脂肪合成的两种主要前体:L-α-phosphoglycerol和fatty acyl-CoA,前 者来源于DHAP或glycerol
脂肪组织甘油激酶活性通常较低,甘油-3-磷酸主要由DHAP还原产生;DHAP还可 来自甘油异生。
甘油三酯的合成
磷脂的代谢
甘油磷脂的酶解
参与磷脂分解代谢的酶为磷脂酶(phospholipases),包括A(A1和A2)、B、C和D四大类
磷脂酶A水解磷脂中的脂酰酯键,生成溶血磷脂和脂肪酸;溶血磷脂酶再水解剩 余脂酰基。
甘油磷脂的合成
磷脂酸 (phosphatidic acid) 的合成
磷脂酸一旦形成,很快转化为CDP-二酰甘油或者二酰甘油,两种物质分别通过各 自的头部对接方式生成甘油磷脂
磷脂酰丝氨酸 (PS) 的合成
卵磷脂的合成
酵母卵磷脂的合成:从PS开始
卵磷脂合成中的甲基供体:S-腺苷甲硫氨酸
哺乳动物卵磷脂的补救合成
胆碱 (choline) 通过饮食摄入,在胆碱激酶催化下磷酸化为磷酸胆碱,再生成 CDP-胆碱,最后形成磷脂酰胆碱 (PC)
动物细胞中的主要合成途径
Kennedy pathway 本质上是一条把“游离头基”装配到甘油骨架上的模块化合成路线,核心思想是: 先把胆碱或乙醇胺“活化成 CDP-形式”,再把它们接到二酰甘油(DAG)上。这条路在真核细胞尤其重要,但不同生物对它的依赖程度差别很大:哺乳动物强依赖,酵母半依赖,细菌基本不用
缩醛磷脂的合成需要醚键连接的脂肪醇
鞘脂的代谢
鞘氨醇(sphingosine)的合成
N-脂酰二氢鞘氨醇的生物合成
神经酰胺、鞘磷脂、鞘糖脂的生物合成
胆固醇的代谢
肠肝循环 (Enterohepatic circulation)
肠肝循环是指经胆汁或部分经胆汁排入肠道的物质(如胆固醇、胆汁酸、胆红素、 药物等),在肠道中又重新被吸收,经门静脉又返回肝脏的现象
胆固醇的合成
原料:Acetyl CoA
胆固醇合成主要涉及胞质及内质网相关酶,不能仅归于某一个区室。
过程
乙酰-CoA合成甲羟戊酸
异戊烯焦磷酸(IPP)与二甲基烯丙基焦磷酸(DMAPP)是异戊二烯类合成的活化 C5单位。
C10牻牛儿基焦磷酸合成
C15法尼基焦磷酸
C30鲨烯的合成
鲨烯转变为四个环的固醇核
胆固醇的分解及转化
转变为胆甾烷醇(cholestanol)和粪甾醇(koprosterol, stercorin)排 泄
转变为胆酸 (cholic acid),主要通过环状结构的环核羟化及侧链的降解,环核 羟化需NADPH和O2,混合功能加氧酶,侧链氧化主要为ω-氧化后再进行β-氧化
转变为其它物质,主要包括类固醇激素和维生素D
紫外线照射产生维生素D3
胆固醇合成代谢的调节
受胞内胆固醇浓度和激素 (glucagon and insulin)的调节
限速步骤HMG-CoA→MVA,由HMG-CoA还原酶催化,受胆固醇 衍生物及MVA的变构抑制,还受激素调控,磷酸化失活、去磷酸 化激活
高的胞内胆固醇浓度激活ACAT,促进胆固醇酯化而储存
高的胞内胆固醇浓度引起LDL受体减少,减缓从血液中吸收胆固醇
胆固醇酯的生成
Acyl-coA-Cholesterol Acyl-transferase (ACAT), 在体内催化胆固醇与 长链脂酰CoA连接形成胆固醇酯, 在胆固醇的吸收、运输和贮存过程 中起重要作用。为脂蛋白组装提供胆固醇酯。病理条件下ACAT催 化形成过多的胆固醇酯可引起动脉粥样硬化
脂蛋白
乳糜微粒(chylomicron, CM),电泳位置在原点,直径最大,比重最小, 含脂比例最大[98%]
前β脂蛋白通常对应VLDL;富含三酰甘油,其大小、密度和组成具有一定分布。
β-脂蛋白,电泳出现在β-球蛋白处,直径及含脂比例(70%)小于前两 者,相当于LDL
HDL富含蛋白质,脂质与蛋白比例随亚型而变;不宜把所有HDL的脂质含量固定为 67%。
蛋白质降解和氨基酸的分解代谢
蛋白质的降解
乳糜泻,Celiac disease
乳糜泻是遗传易感者摄入麸质后发生的免疫介导疾病,可损伤小肠绒毛并引起吸 收不良;不是麸质黏住肠壁所致。
蛋白质的腐败:肠道细菌对未被消化的蛋白质及蛋白质的消化产物起的作用称为腐败作用
胺类的生成
氨的生成
未被吸收的氨基酸在肠道细菌作用下脱氨基生成
血液中尿素进入肠道,受肠菌尿素酶的水解生成氨可被吸收入血液。 / 降低肠 道pH,可减少氨的吸收
其它有害物质生成
腐败作用还可产生其它有害物质。如:苯酚、吲哚、甲基吲哚、硫化氢, 大部分有害物质随粪便排出,只有小部分被吸收经肝代谢解毒,正常情 况下不会发生中毒现象
氨基酸分解代谢
脱氨(基)作用 (Deamination)
非氧化脱氨:主要存在于微生物中,而在动物体内并非主要的脱氨途径
氧化脱氨
L-amino acid oxidase (LAAO),分布不广、活力低,一类以FAD为辅基、另一类以FMN为辅基(人和动物)。对Gly; L-Ser, L-Thr; LGlu, L-Asp; L-Lys, L-Arg, Ornithine(鸟氨酸)无作用
D-amino acid oxidase(DAAO),以FAD为辅基,分布广,但作用不大
氧化专一amino acid的酶
L-谷氨酸脱氢酶,L-Glu Dehydrogenase (GDH)
联合脱氨作用:氨基酸脱氨通过转氨作用和L-Glu Dehydrogenase (GDH)催化的L-Glu氧化脱氨作用联合完成。弥补L-aa oxidase分布少、活力低的缺陷。广泛存 在,但并不是所有组织细胞的主要脱氨方式
转氨基作用(Transamination)
Transaminase催化,一个L-amino acid的α-NH2转移到一个α-酮酸上使 之变成相应的L-amino acid,自身转变为相对应的α-酮酸
酶均以磷酸吡哆醛为辅基
多数氨基酸可参与转氨,但途径与酶特异性不同;赖氨酸、苏氨酸通常不以常规 α-转氨作为主要分解起始步骤,脯氨酸亦采用不同途径。
GDH联合脱氨作用的局限性
能量状态依赖性过高: GDH活性受细胞能量状态高度调节。在能量 充足(高ATP、高GTP)时,GDH被强烈抑制 ;只有在能量较低 (ADP积累)时,GDH才被激活。如骨骼肌和心肌这类能量需求波 动极大且迅速的组织中,这种严格依赖能量状态的调节机制可能不 够灵活或反应不够快
辅酶偏好性与还原力平衡:在哺乳动物体内进行GDH脱氨反应时主 要利用NAD⁺。这意味着反应会产生大量NADH(还原力)。细胞需 要处理这些NADH(主要通过氧化磷酸化或穿梭系统),这涉及到 线粒体功能和氧气供应。在某些情况下(如剧烈收缩后的肌肉), 氧气供应受限,处理额外的NADH可能成为负担或受限
通过嘌呤核苷酸循环联合脱氨:嘌呤核苷酸循环 (purine nucleotide cycle) 的联合脱氨作用,次黄嘌呤核苷一磷酸 (IMP) 与Asp形成腺苷酸代琥珀酸(adenylosuccinate),再经裂合酶分解产生AMP和延胡索酸,AMP在腺苷酸脱氨酶作用下生成NH3和IMP
嘌呤核苷酸循环在骨骼肌中尤为重要,可参与氨基酸氮的处理及延胡索酸的生成; 不能概括为肝、脑等组织共同的主要脱氨方式。
优势
剧烈收缩使ATP消耗增加,腺苷酸激酶反应可提高AMP水平。AMP通常激活PFK-1等 能量代谢调节环节,不是糖酵解的抑制物。
AMP脱氨酶将AMP转为IMP并释放氨,参与运动时的腺嘌呤核苷酸调节;循环再经 天冬氨酸参与的反应生成延胡索酸并再生AMP。
连接氨基酸代谢与嘌呤代谢/能量代谢: PNC将氨基酸脱氨与嘌呤 核苷酸的补救合成途径(通过腺苷琥珀酸合成酶和裂解酶再生AMP )紧密联系。产生的代谢中间产物(如延胡索酸)可以直接进入 TCA循环产能。这种整合提供了代谢的灵活性
脱羧(基)作用 (Decarboxylation)
哺乳动物组氨酸脱羧酶依赖PLP;某些细菌另有依赖丙酮酰基的组氨酸脱羧酶, 不能混为同一辅基体系。
氨的转运-通过Gln带到肝脏
肌肉中利用Ala将氨运送到肝脏,即Glc-Ala Cycle
尿素的形成
氨甲酰磷酸的合成
关键酶氨甲酰磷酸合成酶I被N-乙酰谷氨酸变构激活
瓜氨酸的合成
精氨琥珀酸合成
精氨酸合成
尿素循环:精氨琥珀酸裂解
精氨琥珀酸裂解产生精氨酸和延胡索酸(fumarate);这里不是琥珀酸( succinate)。
精氨酸裂解生成尿素
某些尿素循环缺陷可使用苯甲酸钠、苯乙酸钠或相关药物,通过形成可排泄含氮 产物帮助清除氮;不能替换为“吃含苯甲酸或苯乙酸的食物”。
肝昏迷 (Hepatic coma)
肝功能严重受损时,氨清除能力下降;脑星形胶质细胞可将Glu与氨合成Gln,但 过量氨会扰乱脑代谢。
高氨可引起星形胶质细胞Gln积累、渗透性肿胀,并影响能量代谢及神经传递; 肝性脑病不能仅归结为α-酮戊二酸耗尽。
Glu是主要兴奋性递质,GABA是主要抑制性递质;Gln主要参与氮转运及递质循环, 不能直接列为抑制性神经递质。
氨干扰神经细胞膜上的Na+、K+-ATP酶的活性
氨基酸碳骨架的氧化途径
仅生酮氨基酸(Ketogenic AA)
分解产物为Acetyl CoA, 或Acetoacetate
Leu和Lys
生糖生酮氨基酸
Trp, Tyr, Thr, Ile, Phe (TTTIP)
氨基酸衍生物
一碳单位
一些氨基酸在代谢过程中产生含一个碳原子的基团,经过转移参与 生物合成反应,这种含一个碳原子的基团被称为一碳单位 (C1 Unit 或One Carbon Unit,OCU)。一碳单位生成和转移的代谢为一碳代谢
生物体的一碳单位有:甲基 [-CH3,methyl]、甲烯基 [亚甲基,-CH2, methylene]、甲炔基 [-CH=,methenyl]、甲酰基 [-CHO,formyl]、亚 氨甲基 [-CH=NH,formimino]等
四氢叶酸是体内一碳单位转移酶的辅酶
四氢叶酸与一碳单位的转变
生物体内合成胆碱、肌酸、肾上腺素等所需的甲基都是由S-腺苷甲 硫氨酸提供。S-腺苷甲硫氨酸是大约50种不同甲基受体的供给者
虽然甲硫氨酸是甲基的供给者 (donor),但是,甲硫氨酸的甲基却只 / 能由极 少数反应提供,主要途径是从N5-甲基四氢叶酸 (5-meTHF) 的 / 甲基转移到同 型半胱氨酸 (homocysteine)上
氨基酸的生物合成和生物固氮
氨的同化作用
谷氨酰胺合成酶(glutamine synthetase,GS)消耗ATP,将Glu与氨合成Gln。 谷氨酸合酶(GOGAT)利用Gln与α-酮戊二酸,在还原力参与下生成2分子Glu。
氨基酸的生物合成
氨基酸转化为其他代谢物
Tyr合成多巴胺和肾上腺素等
色氨酸可作为合成烟酸及NAD⁺的前体之一;烟酸(niacin)不是尼古丁( nicotine)。
Gly和Arg合成肌酸
His合成组胺
鸟氨酸合成多胺[腐胺、亚精胺、精胺]
Glu合成GABA
Cys合成牛磺酸
核酸的降解和核苷酸代谢
核酸和核苷酸的分解代谢
核酸降解
核苷酸的分解代谢
碱基代谢
嘌呤分解中的脱氨基作用:脱氨作用可以在嘌呤、核苷或核苷酸的水平上进行
动物组织腺嘌呤脱氨酶含量极少, 而腺嘌呤核苷脱氨酶及腺嘌呤核苷 酸脱氨酶的活性较高,因此腺嘌呤 的脱氨基作用主要在核苷或核苷酸 水平上进行
鸟嘌呤脱氨酶分布广,脱氨基作用 主要在碱基水平进行
尿酸生成
不同生物嘌呤核苷酸的分解产物不同
痛风(Gout)
高尿酸血症可由尿酸排泄减少和/或生成增加引起;尿酸盐结晶沉积后可激活炎 症反应,引起痛风,不能仅用“尿酸产生过多”解释。
痛风药物须区分用途:秋水仙碱及部分NSAIDs用于控制急性炎症;别嘌醇等用于 长期降低尿酸,不能把两类作用混为一谈。
别嘌醇是次黄嘌呤的一种类似物,是一种 强效的黄嘌呤氧化酶抑制剂:自杀底物 (Suicide Substrate)
秋水仙碱通过阻断微管动力,抑制中性粒细胞的迁移、吞噬和炎症小体激活,从而缓解痛风急性炎症,而不是降尿酸本身
嘧啶
核苷酸的生物合成
嘌呤核糖核苷酸的合成
De novo synthesis
磷酸核糖基焦磷酸 (PRPP)
核糖经过活化进入反应,再一点一点把嘌呤碱基拼出来
IMP的合成
IMP合成的能量消耗(人类)
Salvage Pathway
利用现成的Adenine (Ade)通过腺嘌呤磷酸核糖基转移酶 (APRT) 实 现AMP的补救合成;利用现成的Hypoxanthine和Guanine (Gua)通过 次黄嘌呤-鸟嘌呤磷酸核糖基转移酶 (HGPRT) 实现IMP、GMP的补 救合成
嘌呤补救:APRT
嘌呤补救:HGPRT
嘌呤补救合成在许多组织均很重要;不同组织对从头合成与补救途径的依赖不同, 不能说脑或骨髓绝对只有补救合成。
嘧啶核糖核苷酸的合成
De novo synthesis
Gln和CO2在氨甲酰磷酸合成酶II (CPS-II) 的作用下合成氨甲酰磷酸
CPS I与CPS II比较
氨甲酰磷酸合成氨甲酰Asp 再合成乳清酸
乳清酸经乳清苷酸合成UMP
UTP合成CTP
Salvage Pathway
嘧啶补救合成的物种差异
人类胞嘧啶通常不直接经PRPP形成CMP;可通过核苷水平补救。某些微生物具有 胞嘧啶磷酸核糖转移酶,故不能说自然界从未发现。
脱氧核糖核苷酸的合成
核糖核苷酸还原酶
以Ia类核糖核苷酸还原酶为例:R1的半胱氨酸巯基参与催化,R2的双铁中心帮助 形成并稳定酪氨酸自由基;不同类别的自由基发生系统可不同。
羟基脲可清除核糖核苷酸还原酶所需的酪氨酸自由基而抑制其活性,不应简单定 义为Fe³⁺螯合剂。
硫氧还蛋白 (thioredoxin)
谷氧还蛋白 (glutaredoxin)
辅酶核苷酸的生物合成
嘌呤核苷酸的抗代谢药物
蒋知澄 2026.1