导图社区 遗传学
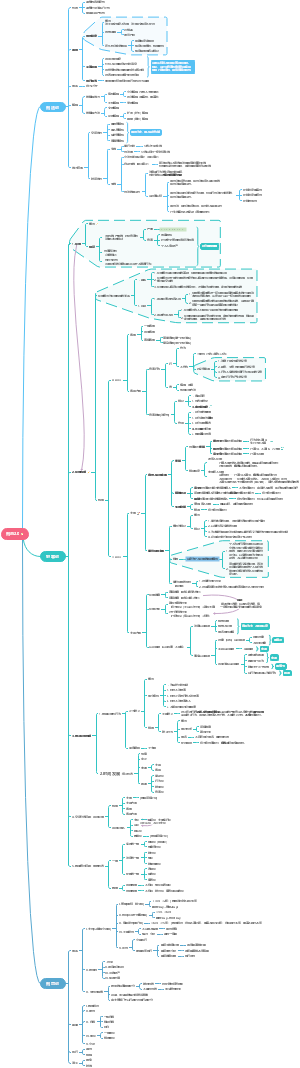
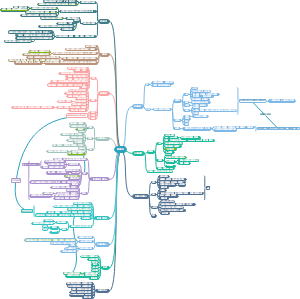
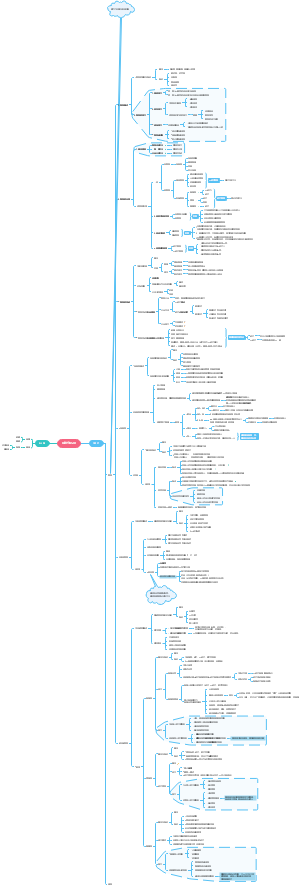
该思维导图涵盖从经典遗传到分子遗传的核心模块。孟德尔遗传的拓展部分介绍了等位基因、表型与基因型概念,以及不完全显性、共显性、复等位基因等非孟德尔遗传现象;数量性状遗传阐述了多基因假说、遗传率及近交与杂种优势;基因概念的发展从经典概念延伸至顺反子、重叠基因、跳跃基因及RNA编辑;连锁与交换解析了基因连锁、互换率计算及三点测交等作图方法。此外,还系统介绍了遗传与演化(群体遗传学与演化机制)、遗传分析方法(模式生物、系谱分析等)、表观遗传调控(DNA甲基化、组蛋白修饰、X染色体失活)以及基因表达调控与基因组学(人类基因组计划、基因组测序与分析)。适用于生命科学及医学专业学生复习备考、科研人员查阅遗传学核心概念,以及生物学教师备课参考。
提示: 本内容由社区用户上传并分享。平台不对内容的真实性、合法性、知识产权归属及是否侵害第三方权利进行事前审核或保证。本内容可能包含受版权保护的图片、字体或其他第三方素材,使用前请自行确认授权范围。
该思维导图涵盖从经典遗传到分子遗传的核心模块。孟德尔遗传的拓展部分介绍了等位基因、表型与基因型概念,以及不完全显性、共显性、复等位基因等非孟德尔遗传现象;数量性状遗传阐述了多基因假说、遗传率及近交与杂种优势;基因概念的发展从经典概念延伸至顺反子、重叠基因、跳跃基因及RNA编辑;连锁与交换解析了基因连锁、互换率计算及三点测交等作图方法。此外,还系统介绍了遗传与演化(群体遗传学与演化机制)、遗传分析方法(模式生物、系谱分析等)、表观遗传调控(DNA甲基化、组蛋白修饰、X染色体失活)以及基因表达调控与基因组学(人类基因组计划、基因组测序与分析)。适用于生命科学及医学专业学生复习备考、科研人员查阅遗传学核心概念,以及生物学教师备课参考。
这是一篇关于生物化学思维导图,糖的构型与旋光性并不必然一致,D 型糖不一定是右旋糖,L 型糖也不一定是左旋糖,二者判定依据完全不同:D/L 构型以距离羰基最远的手性碳原子上羟基相对位置划分,属于相对构型标记;右旋、左旋是偏振光偏转方向,为实测物理性质,葡萄糖只是特例,D - 葡萄糖为右旋,L - 葡萄糖为左旋,自然界中天然葡萄糖均为 D-Glc。本简介围绕生物化学核心内容展开,覆盖两大主干板块,包含物质代谢与生物能学、生物分子结构与功能,细分核酸与核苷酸代谢、氨基酸与蛋白质代谢、脂质代谢、多条糖代谢途径、氧化磷酸化、柠檬酸循环等重点通路,同时包含酶学、维生素与辅酶等基础模块。内容不仅梳理基础生化的经典考点,解析各类生物大分子结构特点、代谢反应流程、关键酶调控机制与能量转换规律,还融入前沿拓展内容,介绍端粒 G 四链体与 i-motif 结构对细胞衰老的调控影响,以及磷脂酰胆碱 PC 在甘油磷脂体系中的乳化作用。适合生化用于课程复习、考点梳理与拓展阅读。
该思维导图分为光学导论、光的衍射与干涉两大板块。光学导论梳理光的本性相关学说,包含微粒说、波动说、光量子说,同时划分几何光学、波动光学、量子光学三大分支;介绍光强定义、简谐波复数表示、费马原理等基础概念,讲解光程与光程差的计算规则,铺垫波动光学基础。光的衍射与干涉板块先讲解波的叠加原理、相干条件,再展开干涉内容,涵盖杨氏双缝干涉、薄膜干涉、迈克耳孙干涉仪,阐释分光原理、条纹计算与相位差规律;衍射部分介绍衍射现象、菲涅耳衍射与夫琅禾费衍射,重点梳理单缝衍射、圆孔衍射、多缝衍射、光栅衍射,罗列明暗纹条件、艾里斑特点、光栅色散等核心公式与结论,区分各类衍射图样特征,串联起波动光学核心重难点,方便梳理逻辑、记忆公式。
社区模板帮助中心,点此进入>>
该思维导图涵盖从经典遗传到分子遗传的核心模块。孟德尔遗传的拓展部分介绍了等位基因、表型与基因型概念,以及不完全显性、共显性、复等位基因等非孟德尔遗传现象;数量性状遗传阐述了多基因假说、遗传率及近交与杂种优势;基因概念的发展从经典概念延伸至顺反子、重叠基因、跳跃基因及RNA编辑;连锁与交换解析了基因连锁、互换率计算及三点测交等作图方法。此外,还系统介绍了遗传与演化(群体遗传学与演化机制)、遗传分析方法(模式生物、系谱分析等)、表观遗传调控(DNA甲基化、组蛋白修饰、X染色体失活)以及基因表达调控与基因组学(人类基因组计划、基因组测序与分析)。适用于生命科学及医学专业学生复习备考、科研人员查阅遗传学核心概念,以及生物学教师备课参考。
这是一篇关于生物化学思维导图,糖的构型与旋光性并不必然一致,D 型糖不一定是右旋糖,L 型糖也不一定是左旋糖,二者判定依据完全不同:D/L 构型以距离羰基最远的手性碳原子上羟基相对位置划分,属于相对构型标记;右旋、左旋是偏振光偏转方向,为实测物理性质,葡萄糖只是特例,D - 葡萄糖为右旋,L - 葡萄糖为左旋,自然界中天然葡萄糖均为 D-Glc。本简介围绕生物化学核心内容展开,覆盖两大主干板块,包含物质代谢与生物能学、生物分子结构与功能,细分核酸与核苷酸代谢、氨基酸与蛋白质代谢、脂质代谢、多条糖代谢途径、氧化磷酸化、柠檬酸循环等重点通路,同时包含酶学、维生素与辅酶等基础模块。内容不仅梳理基础生化的经典考点,解析各类生物大分子结构特点、代谢反应流程、关键酶调控机制与能量转换规律,还融入前沿拓展内容,介绍端粒 G 四链体与 i-motif 结构对细胞衰老的调控影响,以及磷脂酰胆碱 PC 在甘油磷脂体系中的乳化作用。适合生化用于课程复习、考点梳理与拓展阅读。
该思维导图分为光学导论、光的衍射与干涉两大板块。光学导论梳理光的本性相关学说,包含微粒说、波动说、光量子说,同时划分几何光学、波动光学、量子光学三大分支;介绍光强定义、简谐波复数表示、费马原理等基础概念,讲解光程与光程差的计算规则,铺垫波动光学基础。光的衍射与干涉板块先讲解波的叠加原理、相干条件,再展开干涉内容,涵盖杨氏双缝干涉、薄膜干涉、迈克耳孙干涉仪,阐释分光原理、条纹计算与相位差规律;衍射部分介绍衍射现象、菲涅耳衍射与夫琅禾费衍射,重点梳理单缝衍射、圆孔衍射、多缝衍射、光栅衍射,罗列明暗纹条件、艾里斑特点、光栅色散等核心公式与结论,区分各类衍射图样特征,串联起波动光学核心重难点,方便梳理逻辑、记忆公式。
遗传学
孟德尔遗传
细胞分裂是遗传的基础
细胞周期(cell cycle):连续两次细胞分裂之间的过 程,包括间期(G₁、S、G₂)和分裂期(M)。
有丝分裂(mitosis):姐妹染色单体分离,两个子核通 常保留与母核相同的染色体数目。
减数分裂(meiosis)
减数第一次分裂前期 (prophase I)
细线期(leptotene)
第一次分裂开始时,染色质浓缩为几条细而 长的细线,但相互间往往难以区分,染色体 还看不出双重性
偶线期(zygotene)
同源染色体开始配对,这一过程被称为联会 (synapsis)。联会中会出现联会复合体 (synaptonemal complex),完成联会的 同源染色体被称为双价体(bivalent)
粗线期(pachytene)
染色体继续缩短变粗,光学显微镜下可见姐 妹染色单体,两条同源染色体形成四联体 (tetrad)。非姐妹染色单体之间可以发 生交换
双线期(diplotene)
双线期同源染色体开始分离,在交叉处仍相连。交叉是 此前非姐妹染色单体发生交换的细胞学表现。
终变期(diakinesis)
同源染色体仍有交叉;染色体螺旋化达到 最高;核仁和核膜消失,纺锤体开始形成, 双价体向赤道面移动
孟德尔遗传定律
分离定律
孟德尔研究一对相对性状的实验结果,后人把它归纳为孟德尔第一定 律,即分离定律(Law of Segregation)
分离定律(law of segregation):杂合子形成配子时, 一对等位基因彼此分离。正常分离时,两类配子的期望 比例为 1∶1。
子二代隐性纯合子在所考察的基因座上与隐性亲本相同, 隐性性状重新出现。
测交:让待测个体与隐性纯合子杂交,由子代表型推断 待测个体的基因型。
自由组合定律
形成配子时,位于不同对同源染色体上的等位基因彼此 独立分离。
后人把这部分结论归纳为孟德尔第二定律,即自由组合定律(Law of Independent Assortment)。从遗传因子的角度描述,自由组合定 律指的是非同源染色体上的非等位基因在形成配子时,各自独立地分 开和组合,在杂交时各种基因型的配子随机结合,形成可以预测比例 的表型和基因型的群体
孟德尔遗传定律的应用
等位基因对数与子代基因型、表现型的关系
n 对独立杂合位点自交:完全显性、无上位作用,表型 分离比为 (3∶1)ⁿ
特定后代的概率
测交子代中,X 为 Aa 个体数
n 个独立子代中,恰有 r 个表现目标性状
实验数据与理论符合程度的检测
拟合优度检验(goodness-of-fit test):比较各类别 的观察数与假设分布给出的期望数。
卡方拟合优度检验的原假设是各类别概率符合指定比例。 统计量衡量观察数与期望数的偏离程度。
卡方统计量(O 为观察数,E 为期望数)
例:水稻测交的分离比
水稻测交:20 株子代中,14 株抗性、6 株敏感
卡方检验:在 5% 水平下未拒绝 1∶1 分离假设
卡方检验取右尾概率。k 类的理论比例均预先给定
5% 水平的卡方临界值(上尾)
同一组测交数据也可用精确二项检验。检验时须合计与 观察结果同样或更极端的结果。
二项分布:恰好观察到 14 株抗性的概率
恰好平分的概率随偶数样本量增加而减小
双侧精确二项检验:合计两端同样或更极端的结果
单基因遗传病
历史
第一例孟德尔遗传疾病的报道
A1 型短指(趾)症(brachydactyly type A1)
Farabee,WC. Hereditary and Sexual Influence in Meristic Variation. A study of Digital Malformations in Man. PhD thesis. Harvard University, 1903.
Online Mendelian Inheritance in Man
第一个以中国学者名字命名的人类孟德尔疾病
贺-赵缺陷症(He-Zhao deficiency)是指人乳牙脱落后,机体丧失了替换恒牙能力的一种遗传疾病
Wang, H., Zhao, S., Zhao, W., Feng, G., Jiang, S., Liu, W., Li, S., Xue, H., He, L. Congenital absence of permanent teeth in a six-generation Chinese kindred. Am. J. Med. Genet. 90: 193- 198, 2000.
家系(pedigree)是根据遗传亲缘关系绘制出来的家族成员系谱图
类型
AD = 常染色体显性遗传 (Autosomal Dominant)
亨廷顿舞蹈病(Huntington Disease)
常染色体显性多囊肾病(ADPKD)
林奇综合征(遗传性非息肉病性结直肠癌,HNPCC)
马方综合征(Marfan Syndrome)
多指/趾症(polydactyly)
AR = 常染色体隐性遗传 (Autosomal Recessive)
囊性纤维化(cystic fibrosis)
半乳糖血症(galactosemia)
尿黑酸症(alcaptonuria)
苯丙酮尿症(phenylketonuria)
白化病(albinism)
XLD = X 连锁显性遗传 (X-linked Dominant)
X 连锁低磷血症(X-linked hypophosphatemia)
遗传性肾炎(Hereditary nephritis)
色素失禁症(incontinentia pigmenti)
XLR = X 连锁隐性遗传 (X-linked Recessive)
血友病(Hemophilia)
葡萄糖-6-磷酸脱氢酶缺乏症(G6PD deficiency)
X 连锁少汗型外胚层发育不良(XLHED)
红绿色盲(Red-green color blindness)
YD = Y 连锁遗传 (Y-linked / Holandric)
MT = 线粒体遗传 (Mitochondrial / Maternal)
动态突变(dynamic mutation):基因内部的寡核苷酸 (如HTT基因的CAG) 重复数目发生变化
孟德尔遗传的拓展
等位基因间的相互作用
基础概念
基因(gene):遗传信息的单位,不同基因决定了不同类型 的性状。如珠蛋白编码基因,ABO血型决定基因,白眼基因,小 翅基因等。一个特定的物种具有特定的基因类型和拷贝数
等位基因(allele):同一基因的不同变异类型。如D和d是决 定豌豆植株高矮的两个等位基因,其中D是显性等位基因,d是隐 性等位基因。在同一个物种的不同群体中,等位基因的类型和数量 一般都不相同
完全显性(complete dominance)
显性等位基因能够完全遮盖隐性等位基因 的作用,杂合子的表型与显性等位基因的 纯合子相同
不完全显性(incomplete dominance)
杂合子的表型介于两种纯合子之间,如红花与白花杂交 得到粉花。
共显性(codominance)
杂合子同时表现两个等位基因各自的表型,如 AB 血型 同时表达 A 抗原和 B 抗原。
镶嵌显性(mosaic dominance)
双亲的性状可以在杂交子一代的同一个体的 不同部位表现出来的现象
等位基因之间的显隐性关系不是一成不变的,标准不同,显隐性关系不同
致死等位基因(lethal allele)
导致个体死亡的基因
非等位基因间的相互作用
互补效应(complementary effect; 分离比变形为 9:7 )
上位效应(epistasis):一个基因座的基因型掩盖或改 变另一基因座的表型效应。
隐性上位(recessive epistasis; 分离比变形为 9:3:4 )
显性上位(dominant epistasis; 分离比变形为 12:3:1 )
修饰基因(modifier)
抑制基因 ( suppressor; 分离比变形为 13:3 )
限制基因(restriction gene)
强化基因(intensifier)
表现度和外显率
表现度(expressivity):某一特定基因在不同个体间,对它控制的性 状的不同表现程度。即同一基因的表现型变化的程度
群体中基因型相同的个体可能呈现出不同表现程度,这种现象叫做可变 表现度(variable expressivity)
某些具有合适基因型的个体没有表现出相应的性状,这种现象被 称为不完全外显(incomplete penetrance)
外显率(penetrance):具有特定基因型的个体中,表 现出相应表型者所占的比例。
可变表现度和不完全外显的产生机制
外显率受到检测条件和分析标准的影响
性状实现是个体发育过程中体内、外环境相互作用的结果,因此造 成可变表现度和不完全外显的原因来自遗传和环境两种因素
复等位基因
复等位基因(multiple alleles):群体中同一基因座 有三种或更多等位基因。一个二倍体个体在该座位至多 携带两种。
血型
ABO血型决定基因,孟买血型
核外遗传:细胞器基因的传递常呈单亲遗传。人类线粒 体 DNA 通常经母系传递。
数量性状遗传
数量性状的特点
质量性状(qualitative trait)
表型之间截然不同,具有质的差别,用文字描述的性状称质量性状
如贝壳颜色,豌豆的花色,籽粒的饱满程度等性状
在群体中质量性状呈间断分布
数量性状(quantitative trait):可用数值度量,在 群体中常呈连续变异,如身高。
阈值性状(threshold trait):潜在易感性连续分布, 超过阈值后表现出相应表型。
复杂性状(complex trait):受多个基因以及环境因素 共同影响的性状。
数量性状的遗传特点
两个纯合亲本杂交, F1的表现型一般呈现双亲的中间型
基因型完全相同的纯合亲本和杂交F1代内部均存在一定的性状变异
数量性状通常用群体的均值和方差描述,分别表示性状 的平均水平和个体差异。
F2的表现型的平均值大体上与F1相近,但变异程度远远超过F1
F₂ 中多个位点同时分离,可产生多种基因型组合。表型 变异程度还取决于各位点的效应和环境。
数量性状的遗传规律
数量性状在多因素(multifactorial )(即遗传因素和环境因素)的作用下,表现出连续变异,遵循多因素遗传
数量性状是多对非等位基因共同作用的结果,影响数量性状的遗传位点被称为数量性状位点(quantitative trait loci, QTLs)
每一对基因对表型表现所产生的效应是微效的,称为微效基因
在简单加性模型中,杂合子的基因型值为两种纯合子的 中点。
加性效应可跨位点累加,大小可以不同。一个位点的效 应随另一位点的基因型而变时,称为上位作用。
微效基因对环境敏感
数量性状的遗传率
遗传率描述特定群体和环境中的表型方差。广义遗传率 计入全部遗传方差,狭义遗传率只计入加性遗传方差。
近交系数
近亲交配的分类
近交(inbreeding)指的是有亲缘关系的个体相互交配,繁殖后代
与近交相反的交配方式是异交(outbreeding),即亲缘关系较远个 体间的随机交配
自交(selfing)是亲缘关系最近的近交,就是同一个体产生的雌雄 配子相互结合,繁殖后代
自交的遗传效应:杂合体自交导致基因分离, 后代群体遗传组成迅速趋于纯合化。纯合体 增加的速度和强度取决于杂合基因的对数、 自交代数和选择强度
回交(backcross) 也是一种近交方式,是杂种与其亲本之一的再 次交配
回交的遗传效应:杂合体回交导致后代 群体遗传组成趋向于轮回亲本的基因组成
近交系数
近交系数(F):个体在某个位点上的两份等位基因拷贝 同祖同源的概率。
双亲的亲缘系数若指 relationship coefficient,即共 祖系数的两倍(双亲均非近交时)。子代的近交系数等 于双亲的共祖系数。
基因概念的发展
三位一体的基因概念
突变单位,功能单位,重组单位
三位一体的基因概念的修正
基因不是最小的突变单位
同一功能单位内可以有多个独立发生突变的位点。
互补实验(complementation test)
利用不同突变纯合子杂交得到杂合子一代,根据子一代表型是突变 型还是野生型判断不同突变是否属于同一基因的实验方法
互补实验又称顺反测验(cis–trans test)
按突变位点区分
异点等位基因(heteroallele):在同一个基因内部的不同位点的不 同突变基因,异点等位基因之间不能互补,但可以重组
同点等位基因(homoallele):在同一个基因内部的相同位点或重 叠位点的不同突变基因,同点等位基因之间既不能互补也不能重组
基因不是最小的重组单位
连锁与交换
基因与功能产物是否一一对应?
一般来说,一个基因编码一个多肽或者一条有功能的ncRNA
可变剪接产生不同功能的多肽
基因可调控
操纵子(operon)
结构基因、操纵基因以及结构基因的启动子在内的整个连续的DNA结 构单元称之为操纵子
乳糖操纵子
环境中无乳糖,lacI 编码的阻遏蛋白能够与操纵基因结合,阻断RNA聚合酶在启 动子上的移动,非常低水平的基因转录
环境中有乳糖,乳糖变为异乳糖,异乳糖与阻遏蛋白结合,改变构型,失去与操纵 基因结合的能力,RNA聚合酶转录下游结构基因,开启转录
基因可割裂
腺病毒基因的断裂现象
腺病毒基因组DNA与Hexon 的mRNA进行杂交,电镜观察
基因组片段可以和mRNA形成杂合双链,但在杂合双链的内部溢出3个单链DNA环
Hexon基因内部出现断裂,一些序列在mRNA中被删除
割裂基因
真核生物基因的编码序列在染色体上不是连续排列的,而是被内含子间隔开,被称为“割裂基因”(split gene)
在多细胞真核生物中,绝大部分蛋白质编码基因都是割裂的;在相对简单的单细胞真核生物(如酵母)中,割裂基因比例有所降低;少量古细菌和病毒也有基因割裂现象
多数原核蛋白质编码基因没有内含子,但也有例外。部 分线粒体和叶绿体基因含内含子。
转录起始位点:DNA序列中开始进行RNA转录的位置
启动子:DNA分子上与RNA聚合酶及其辅因子结合形成转录起始复合物并起始mRNA合成所必需的保守序列
多腺苷酸化信号:启动mRNA分子多腺苷酸化的核苷酸序列
非翻译区:成熟mRNA分子中不编码多肽链的序列。一般分布在mRNA 5′端起始密码子上游和3′端终止密码子下游两个末端区域
RNA 剪接:从前体 RNA 中去除内含子,连接外显子。可 变剪接可产生不同的成熟转录本。
基因可跳跃
转座
转座(transposition):转座元件在基因组中的位置发 生改变。
能够从基因组的一个位置运动到另一个位置的DNA序列被称为可动基因(mobile genes),又称为转座元件(transposable elements / transposons)
转座元件在各种生物中分布广泛,种类多样。在高等生物基因组中,转座元件所占据的比重很大
转座的发现
玉米籽粒色斑不稳定遗传(1951年)
Barbara McClintock, 1983年诺贝尔奖
转座的方式
Cut-out, paste-in(包括绝大多数的DNA转座元件,如大肠杆菌的插入元件、复合转座子、玉米的Ac/Ds系统及果蝇的P因子)
Copy-out, paste-in(包括LTR反转录转座元件,如酵母的Ty1,果蝇的copia等)
Copy-out, copy-in(包括TP反转录转座元件,例如人的LINE-1等)
DNA 转座子(DNA transposon):转座中间体是 DNA
细菌中的转座元件
插入序列
插入序列(insertion sequence, IS) 是从细菌的乳糖操纵子的插入突变中发现的
IS 结构简单,两个末端是反向重复序列(inverted repeats, IR),内部是编码转座酶(transposase)的结构基因。二者都是IS转座所必须的
IS插入宿主基因组后会造成交错切割,从而在插入位置上产生短的正向重复序列(direct repeats, DR)
原核细胞中有多种不同类型的IS,它们的长度、两端的反向重复序列和插入后形成的正向重复序列等相互不同
插入片段还可以再切离,如果切离精确,可使IS诱发的突变回复为野生型;不精确切离可使插入位置附近的宿主基因发生缺失
原核细胞的染色体和质粒都可以携带相同或不同 IS元件的不同拷贝
复合转座子
复合转座子(Composite transposon,简称Tn) 是一种复合型细菌转座因子
Tn 的两端通常是两个 IS,构成了“左臂”和“右臂”。两臂可以是正向重复,也可以是反向重复。两端的 IS 可以作为 Tn 的一部分随同转座,也可单独转座
Tn的内部携带与转座无关的一些结构基因(如抗药基因)
复合转座子插入宿主的靶序列后,也在靶序列处形成DR
玉米的转座元件:激活-解离系统
Ac基因(activator):能自主移动,内部编码转座酶,含末端反向重复
Ds基因(dissociation):不能自主移动,内部序列存在缺失,不编码转 座酶,但保留了末端的反向重复序列
在玉米的第9号染色体上,有三对与籽粒颜色有关的等位基因
C 基因座上有两种等位形式,CI 和 C,前者是一个显性抑制子,即单拷 贝的 CI 可以发挥显性抑制作用,抑制糊粉层颜色的发生。而 C 则是一 个隐性基因,只有在纯合时才能促进糊粉层颜色的发生
Bz 基因座上也有两种等位形式,Bz 和 bz,前者是一个显性基因,在 没有 CI 的前提条件下,单拷贝 Bz 就可以促进糊粉层发育为紫色,而 bzbz 纯合子则能促进糊粉层发育为褐色
最后一个重要的基因是 Ds,它是染色体发生断裂的位点所在
Ac存在下Ds诱导的染色体断裂或插入到Bz基因当中是玉米粒出现不同颜色的原因
果蝇的转座元件:P 因子
1977年,Margaret Kidwell, James Kidwell和John Sved等人发现一些不同品系的果蝇的杂交后代出现异常的性状,比如频繁突变,染色体断裂,以及不育,他们把这种现象称作为杂种不育(hybrid dysgenesis)
根据杂交后是否产生不育后代,遗传学家把果蝇品系分为了两大类,P品系和M品系。只有M品系的雌蝇和P品系的雄蝇杂交才会得到杂种不育的后代
造成这一特殊表型效应的DNA序列是一个转座元件,P 因子。P品系携带完整 P 因子,而M品系只携带内部存在缺失的不完整的P 因子
M品系的雌蝇和P品系的雄蝇杂交的子一代果蝇出现杂种不育的原因是 P 因子在发育中的生殖细胞系中发生转座,染色体出现断裂和重排,导致大 量生殖细胞无法发育成熟,因此出现不育性状
为什么雄P和雌M的后代只有不育的 问题,而其他生理结构和功能正常?
原因:只有生殖细胞中发生转座,而在体细胞中转座被抑制了,因为体细胞中出现了内含子保留,导致终止密码子提前出现,产生具有转座抑制活性的截断蛋白而非转座酶
为什么只有雄P和雌M的后代不育?
原因:P 型雌蝇的卵细胞内积累了抑制自身P因子随机转座的因子(其实是piRNA)保护个体发育和种群繁衍。M型果蝇的细胞质中没有抑制机制。
反转录转座子(retrotransposon):转座中间体是 RNA
反转录病毒利用的反转录转座子
反转录转座出现在能自由感染宿主细胞的反转录病毒(retrovirus)和真核基因组中的反转录转座子(retrotransposon)中
长末端重复(long terminal repeat,LTR)是反转录病毒 DNA 的特有结构,也是反 转录病毒整合到宿主基因组所必需的元件
基因突变
按照基因突变的细胞可分为
体细胞突变
生殖细胞突变
新发突变
新发突变(de novo mutation):新出现于亲本配子或 子代早期发育过程中的变异。受精后发生的突变可形成 嵌合。
按照基因突变的方向可分为
将自然界大量存在的或者实验室中保存的一种标准品系的野生型等位基因形式作为研究生物体基因变异的出发点/标准类型。任何偏离野生型等位基因的变化称为正向突变(forward mutation)
按照基因突变的诱因可分为
按照基因突变的形式可分为
按照基因突变造成的遗传信息变化可分为
按照基因突变的蛋白质产物功能变化可分为
组成型突变(constitutive mutation):突变使得基因产物持续激活, 脱离原有的活性调节
功能丧失型突变(loss-of-function mutation):突变破坏了某基因 的正常功能,得到无功能或部分功能的产物
功能丧失型突变一般都是隐性突变,即突变杂合子的表型和野生型相同, 仅纯合子有突变表型
功能获得型突变(gain-of-function mutation):突变使得基因获 得某种新功能或者原有功能增强,从而产生新表型
功能获得型突变一般都是显性突变,即突变杂合子的表型和野生型不 同,表现出突变表型
基因分型(genotyping):确定个体在一个或多个基因 座上的基因型。
连锁与交换
连锁与交换
连锁(linkage):同一染色体上的基因以及它们所控制的性状结合在一起传递的现象
连锁与交换定律:同一染色体上的基因倾向于一同传递。 位点间发生交换时,可产生重组配子。
交叉(chiasma):减数第一次分裂前期的双线期可见同 源染色体相连的部位,是非姐妹染色单体先前发生交换 的表现。
交换(crossing over):同源染色体的非姐妹染色单体 互换对应片段,参与交换的染色单体可形成新的等位基 因组合。
联会复合体(synaptonemal complex,SC)在减数第一 次分裂前期形成,连接已配对的同源染色体,参与联会 和交换。
重组率与遗传距离
在判定两个基因之间是否连锁时,需要将杂合的F1代进行测交
四种测交子代接近 1∶1∶1∶1 时,结果与独立分配相符。 同一染色体上相距很远的位点也可表现出这一比例。
如果后代中仅有两种亲本基因型或者重组型比率低于亲本型,则说明两个基因 之间相互连锁
已知杂合亲本的连锁相时,可用双隐性亲本测交,由子 代表型识别亲本型和重组型。
两位点的重组率(recombination frequency,RF)可由 测交子代估计。
重组率=重组型数目/(亲本型数目+重组型数目)*100%
在短区间,1% 的重组率约对应 1 厘摩(cM)的遗传距 离。
三点测交
交换统计
重组率
三点测交:两端位点的重组率与相邻区间图距
根据测交子代各表型的计数估算重组率。
两点测交的理论重组率上限为 50%。多个交换可能恢复 亲本型,因此远距离位点的重组率会低估遗传距离。
并发率与干涉
双交换使两端标记恢复亲本组合。两个相邻区间的图距 相加得 35.1 cM,两端重组率为 33.5%,差值等于双交 换频率 0.8% 的两倍。
并发率(coefficient of coincidence):观察双交换 频率除以预期双交换频率。无干涉时,预期值为两个相 邻区间重组率的乘积。
若两区间的交换相互独立,并发率为 1,干涉为 0。
干涉=1-并发率=1-0.26=0.74
干涉(interference)描述一次交换对邻近区间另一次 交换概率的影响。观察到的双交换少于独立预期时,称 为正干涉。
链孢霉的四分子分析
遗传标记的概念与分类
遗传标记的应用
染色体畸变
人体染色体的表述
染色体结构变异
缺失(deletion)
缺失的细胞学效应——缺失环
拟显性(pseudodominance):杂合子中,由于显性基因的缺失,使 原来不应表现出来的隐性非致死等位基因的效应显现出来
46,XY,del(3)(q13.1q21)(区间缺失示例)
重复 (duplication)
重复的细胞学效应——重复环
易混概念:脆性 X 综合征通常由 FMR1 基因的 CGG 重 复扩增引起,属于动态突变。
46,XY,dup(4)(q13q31)
倒位(inversion)
倒位的细胞学效应——倒位环
臂内倒位杂合体的倒位环内发生单次交换时,可产生双 着丝粒桥和无着丝粒片段,导致重组产物难以回收。
46,XX,inv(4)(q13q24)
易位(translocation)
罗伯逊易位(Robertsonian translocation):两条非 同源近端着丝粒染色体的长臂融合。
半不育(semisterility):易位杂合子在形成配子时,约半数的配子因为出现染 色体遗传物质的大量重复和缺失而不育
易位杂合子AaBb在形成配子时(A和B分别位于发生易位的两条非同源染色体上), 存活配子中仅有Ab、aB型两种配子可见,表现为“拟连锁”(pseudolinkage)
46,XY,t(4;20)(q25;q12)
染色体数目变异
非整倍体:个别染色体数目增减,如单体或三体。整套 染色体组的增减属于整倍性变化。
超二倍体(hyperdiploid):染色体数高于正常二倍体 数目。
亚二倍体(hypodiploid):染色体数低于正常二倍体数 目。
正常二倍体缺少一条染色体称为单体 (monosomy) (2n-1)
缺体(nullisomy,2n−2):同一对同源染色体的两条均 缺失。可由单体自交产生。
基因组
基因组的基本概念
Gene + chromosome = genome
基因组(genome)指的是细胞内全套染色体及其所携带的全部基因, 包括基因序列和基因间序列
基因组学(genomics)是一门对某一物种的所有基因进行基因组作图、 核苷酸序列测定和基因功能分析的分支学科
C值悖论
C值(C Value)是指在每一种生物中其单倍体基因组的DNA总量
生物的C值并不与生物复杂程度(或进化上所处地位)相关的现象称作C值悖论(C Value paradox)
基因组中全部基因的数目与物种的复杂程度同样没有明显的相关性,这被称为G值悖论(G Value paradox)
不同类型的基因组
病毒基因组
病毒基因组容量较小,但组成结构多样化。基因组大小从几kb到几百kb不等
重叠基因,几乎全部序列用于编码蛋白质,提高遗传信息的组织效率
基因组内存在操纵子结构
部分病毒具有极高的变异能力,极具威胁
原核生物基因组:通常以一条主染色体为主,部分还含 质粒。蛋白质编码序列所占比例通常较高。
线粒体基因组
线粒体 DNA 与蛋白质结合形成拟核。动物线粒体基因组 通常为环状,其他生物的线粒体基因组结构更多样。
主要负责编码少量rRNA、tRNA和部分呼吸链 组分蛋白质等
叶绿体基因组
闭合环状DNA,有多个拷贝,且拷贝数可变
编码的基因数较多,包括tRNA基因,rRNA基 因,RNA聚合酶基因,核糖体蛋白编码基因, 光合作用相关蛋白组分的编码基因等。且含有 大量内含子序列
单细胞真核生物基因组
特点
遗传冗余指不同基因具有部分重叠的功能,常源于基因 复制。原核与真核生物均可出现。
酿酒酵母
酿酒酵母单倍体核基因组约 12 Mb,含 16 条染色体。
5885个蛋白质编码基因
其基因组内出现相当数量的冗余序列,包括非编码重复序列和多拷贝基因
人类基因组的组成
人类基因组的组成
人类单倍体核基因组约 30 亿碱基对,含 22 条常染色 体和一条性染色体。线粒体另有自己的基因组。
G+C含量偏低,全基因组平均~41%,且不同染色体不同区段的GC含量不同
人类约有 2 万个蛋白质编码基因,蛋白质编码序列约占 核基因组的 1.5%。
编码蛋白质的功能
42%功能未知
酶占10.28%
信号传导占12.2%
核酸酶占7.5%
转录因子占6.0%
信号分子占1.2%
受体分子占5.3%
选择性调节分子占3.2%
基因的大小
假基因
假基因(pseudogene)又称拟基因,指的是与基因组中有功能的基因具有相 似的序列,但失去蛋白质编码功能或者不能正常转录表达的DNA序列
假基因的形成方式
非加工假基因 (nonprocessed pseudogene) 是在基因组进化过程中功能基因复制后发生突变产生的失活产物。例如,α-globin基因簇内的3个假基因,β-globin基因簇内的1个假基因
这些假基因同样是在演化中由复制产生的,序列和正常基因高度相似,但由于随机的基因突变丧失了正常的蛋白质编码功能——不能正常转录或者转录产物不能翻译出有功能的蛋白质
加工假基因(processed pseudogene):成熟 mRNA 经 逆转录形成的 DNA 拷贝插入基因组后,失去原基因的编 码功能。
加工假基因通常缺少原基因的内含子和启动子,部分拷 贝在 3′ 端保留 poly(A) 尾的痕迹。
非编码 RNA
人类基因组中,大量的DNA序列尽管不编码蛋白质,但可以转录出有功能的ncRNA。 迄今,已发现的ncRNA基因达18400个,是功能DNA的重要补充
ncRNA的编码基因有的位于蛋白质编码基因的内部(如内含子),有的位于蛋白质编码基因的相关序列(如假基因),还有的位于基因间的间隔序列
重复序列(repeated sequences), 是指基因组中重复出现的序列。 人类基因组中重复序列的比例略 高于单一序列
串联重复序列
用等密度氯化铯梯度离心法分离匀质基因组DNA时,在主带附近会出现副带DNA,其 中的主要组成就是串联重复序列,因此得名(like satellites)
根据重复核心单元的大小分为
大卫星DNA(megasatellite DNA)
卫星DNA(satellite DNA),通常出现在染色体着丝粒区域
小卫星DNA(minisatellite DNA),一般位于端粒附近位置
微卫星DNA(microsatellite DNA),分布于各条染色体上,由于它的重复拷贝数在人群中可变度高,已被开发成为常用的遗传标记
散在重复序列
短散在核序列(short interspersed nuclear element, SINE)
Alu 是人类基因组中约有 100 万份拷贝的短散在核元件。 其主体由两个相似的单体组成,因含 AluI 限制酶识别 位点而得名。
Alu 来源于 7SL RNA。7SL RNA 是信号识别颗粒(SRP) 的 RNA 组分。人类基因组中,Alu 在富含 GC 的区域较 多。
长散在核序列(long interspersed nuclear element, LINE)
较长,一般为6kb,内部含有一个为RNA聚合酶II所识别的启动子序列,两 个开放阅读框。人类基因组含有三个 LINEs 家族,即LINE-1(有转座活性), LINE-2 和 LINE-3(无转座活性),共占基因组的21%。LINE-1 发生转座时,反 转录产物通常具有不完整的5’端,得到许多截断突变体并插入到基因组中,平均大小 仅1kb左右
人类 LINE-1 全长约 6 kb,基因组中有数十万份拷贝。 多数拷贝发生截短或累积了突变,仅少数保留转座活性。
具有长末端重复序列的LTR元件(retrovirus-like element,反转录病毒类似元件)
DNA转座子化石是基因组中第二类转座元件直接以DNA形式发生转座,但它们 在人类基因组中完全丧失了转座活性
片段性重复(segmental duplications, SDs)是 基因组中的另一类散在重复序列,也称为低拷贝重 复(low-copy repeats, LCR),占人类基因组 5.3%左右
SDs的发现具有重要的临床意义,因为SDs易造成 染色体的非等位同源重组,诱导基因组变异
基因组作图与测序方法
鸟枪法测序(shotgun sequencing):随机打断 DNA, 分别测定多个片段的序列,再利用片段间的重叠关系组 装。
测序深度(sequencing depth):实际测 序得到的碱基总量与基因组大小的比值, 它是评价测序质量的重要指标。例如比值 为10,则测序深度为10,也称为10x
均匀随机测序:深度为 m 时单个位点未被覆盖的概率
评估基因组组装质量 – 相关名词
Contig NG50:将 contig 按长度降序累加,首次达到估 计基因组大小 50% 时,最后计入的 contig 长度即 NG50。
在相同的基因组大小估计下,NG50 越大,表示组装片段 整体越连续。该指标不能单独判断组装是否正确。
基因表达调控
基因表达调控概论
色氨酸操纵子
衰减作用(attenuation)是原核细胞在转录终止层次上的一种基因表达调节方式
衰减子(attenuator)
在色氨酸操纵子的启动子的下 游,第一个结构基因TrpE的上 游,有一段162bp的调控序列。 它包含以下关键结构
trpL调节区,负责编码色氨酸mRNA的引导序列(内部含有两个连续的Trp密码子)
4段可通过碱基配对形成发夹结构的碱基序列,3区和4区就是衰减子中的回文序列,当它们配对时,可形成终止子结构,终止转录
色氨酸存在时
Trp-tRNA丰富,翻译能够顺利进行,核糖体不会占据1区位置,3区 和4区能够配对,形成终止信号,抑制下游基因的继续转录
色氨酸缺乏时
Trp-tRNA不足,核糖体停止在mRNA链上,占据了1区位置,因此2区和3区配对,转录终止信号无法形成,转录继续进行
遗传与基因表达调控
免疫球蛋白基因的DNA重排
转录因子
序列特异性转录因子(sequence-specific TFs)
相关的序列
增强子
沉默子
启动子
绝缘子
启动子邻近元件(promoter-proximal elements)
普遍转录因子(General transcription factor, GTF)
共激活/共抑制因子
表观遗传调控
DNA甲基化
真核细胞中,DNA甲基化主要发生在胞嘧啶脱氧核苷酸的胞嘧啶(C)的5位碳上, 形成5-甲基胞嘧啶脱氧核苷酸(5mC)
哺乳动物细胞中,DNA甲基化主要发生在5’-CpG-3’ 二核苷酸中的C上;植物细胞中,DNA甲基化可以发生在更多的位置,除了CG 二核苷酸,还有 CHG 和 CHH三核苷酸(H代表A或C或T,H’代表H的互补碱基)
CpG 指的是 DNA 序列中的 C(胞嘧啶)和 G(鸟嘌呤)相邻排列,且以 5’→3’ 方向书写为 C–p–G 的二核苷酸单位
DNA甲基转移酶
CpG岛
CpG岛的甲基化状态并非一成不变, 当某基因的启动子区域出现高甲基化 后,该区域会呈现紧密的染色质结构, 表达水平会被抑制,进一步影响细胞 的正常功能
直接阻止转录因子与基因启动 子(或其他调控序列)的结合来实现
通过5mC结合蛋白来招募转录 阻遏物,从而间接地发挥抑制作用
基因组印记:部分基因的表达取决于等位基因来自父方 还是母方,与亲本来源特异的表观遗传标记有关。
组蛋白修饰
组蛋白不同位点的修饰状态动态调节染色质包装,从而对应不同的DNA行为
在活跃的启动子DNA区域,组蛋白具有标志性的H3K4me2、H3K4me3以及高 乙酰化水平
发生转录的基因序列被富含H3K36me3和H3K79me2标记的组蛋白 所包装
增强子序列结合的组蛋白的特征是高水平的H3K4me1、H3K4me2和H3K27ac
表达沉默的基因通常处在发生了H3K9me2 和/或H3K9me3或H3K27me3 修饰的组蛋白的包装之中
PcG(Polycomb group)和 TrxG(Trithorax group)是一对功能拮抗的表观遗传调控蛋白复合体:PcG 维持基因沉默,TrxG 维持基因激活,它们协同控制发育基因的状态稳定。
非编码RNA
Xist RNA与染色质沉默
X 染色体随机失活由 X失活中心 (Xic,位于Xq13)调控。Xic 位点 包含许多介导X失活的调节基因, 其中Xist,即X (inactive)- specific transcript,编码 17kb 长的Xist RNA,属于 lncRNA
Xist RNA 转录后扩散到X染色体 上,形成“Xist cloud”,招募其他 组蛋白修饰蛋白进一步沉默整条 X染色体的表达
遗传分析方法
模式生物遗传分析的策略与方法
正向遗传学(forward genetics)
通过生物个体或细胞的基因组的自发突变或人工诱变,首先寻找相关的表型或性状改变,然后从这些特定性状变化的个体或细胞中找到对应的突变基因,并揭示其功能的研究方法
无偏性。由于不预设候选基因,它特别擅长发现意料之外的关键因子,很多经典通路和核心调控因子(如果蝇发育基因、酵母细胞周期基因)都是通过这种方式被发现的
高度依赖可筛选、可量化的表型,对微弱、条件依赖或多基因表型不友好
定位致突变的基因往往耗时耗力,尤其在基因组复杂、世代较长的生物中
功能冗余是一个硬伤:如果多个基因功能重叠,单基因突变可能没有明显表型,从而在筛选中被完全漏掉
反向遗传学(reverse genetics)
在生物个体或细胞内改变某个特定的基因或蛋白质,然后再去寻找有关的表型变化,从而揭示该基因或蛋白质功能的研究方法
核心优势在于目的性和效率
有偏的:你只能研究你已经想到、已经选中的基因,无法系统性地发现未知因子
基因操纵本身可能引入非生理状态
人类单基因性状的基因克隆
功能克隆(functional cloning)
镰刀型细胞贫血症的功能克隆
首先分离纯化正常人和病人的血红蛋白,进行氨基酸测序
据氨基酸序列推测可能的核苷酸序列,合成DNA探针
探针杂交筛选阳性克隆
扩大培养阳性克隆,插入基因测序
定位克隆(positional cloning)
先通过连锁分析技术寻找与目的基因紧密连锁的遗传标记,再从候选的染色体区段内分离并克隆目的基因,最后研究基因功能
全外显子组测序(Whole Exome Sequencing, WES)利用序列捕获技术将全基因组外显子区域DNA捕获,富集后进行高通量测序,用于针对性地研究蛋白质编码区域的遗传变异
人类复杂性状的易感基因筛选
连锁不平衡 ( linkage disequilibrium) 又称等位基因关联(allelic association),是指基因组中不同等位基因位点间存在的非随机关联现象
连锁不平衡(LD)寻找易感基因更像是群体关联分析,捕捉的是等位基因频率与表型的统计关联; positional mapping(定位图谱)寻找致病基因更像是家系或实验群体的因果追踪,直接锁定导致表型的突变
LD 本质上是重组还没打乱位点组合的历史痕迹,它是群体历史 + 物理位置 + 选择压力 + 随机漂变共同作用的结果
病例对照研究(case control study)
直接比较患者群体和正常群体两组群体中某遗传标记等位基因型频率,通过统 计分析是否具有显著的差异。如果有,则认为此位点同疾病相关联。这种方法 易于获得大量群体样本,能有效地进行基因分型,易于操作。且有较高的检出 效能。但是,病例对照研究中由于混杂因素过多容易造成虚假联系,需要选择 严格的对照组和统计分析方法
比值比(odds ratio,OR)
例:携带者与未携带者的患病优势比
队列研究(cohort study)
队列研究按基因型或暴露情况分组,比较各组随后发生 结局的频率。随访资料可前瞻性收集,也可取自既往记 录。
回顾性队列研究(retrospective cohort study)
回顾性队列研究依据历史资料,先按过去的暴露情况分 组,再比较其后发生的结局。研究开始时,暴露与结局 均已发生。
关联分析
基于候选基因的关联分析
全基因组关联分析
全基因组关联研究(genome-wide association study, GWAS):在全基因组范围检验遗传变异与性状的统计关 联。基因型可来自芯片或测序。
遗传与演化
群体遗传学与演化理论
拉马克
获得性遗传:拉马克提出,个体因用进废退而获得的性 状可以传给后代。
达尔文:自然选择使影响生存和繁殖的可遗传性状在世 代间改变频率。
现代达尔文主义(现代综合演化论)
共享一个基因库的群体是 生物演化的基本单位,而生物演化机制的研究 应属于群体遗传学的研究范畴
突变是演 化的原材料,它通过自然选择累积适应性的变 异或者通过遗传漂变随机累积变异,再通过隔 离机制阻止群体间的基因交流,从而促成物种 的演化
基因频率与哈代-温伯格平衡
哈代-温伯格定律
在随机交配的大群体内,基因频率和基因型频率 在没有迁移、突变和选择的理想条件下,世代相 传保持不变。这一定律被称为哈代-温伯格定律 (Hardy-Weinberg law),也称为遗传平衡定律 (law of genetic equilibrium)
平衡条件:群体很大、随机婚配、没有突变、没 有选择、没有迁移
平衡群体中,基因型频率和基因频率的关系为
二等位基因座的哈代–温伯格平衡频率
在随机交配的大群体中,若没有其它因素的影响,基因频 率和基因型频率世代不变
在生物个体随机交配,且没有突变、选择情况下,群体的 基因型频率世代保持不变这样的一个群体称为平衡群体
随机交配一代,基因型频率发生改变的群体不是平衡群体。 任何一个不平衡的大群体,无论其基因频率如何,只要经 过一个世代的随机交配,一对常染色体基因型频率就达到 平衡,形成平衡群体;此时,若没有其它因素的影响,一 直进行随机交配,这种平衡状态始终不变
基因频率的计算
共显性或不完全显性时,可由表型辨认基因型,直接计 数各等位基因拷贝。
完全显性的情况
对完全外显的常染色体隐性性状,群体处于哈代–温伯格 平衡时,隐性等位基因频率等于隐性表型频率的平方根。
对完全外显的常染色体显性性状,平衡群体中,表型频 率为显性纯合子与杂合子频率之和。
显性致病等位基因频率 p 很低时,显性纯合子罕见,可 用表型频率的一半近似估计 p。
罕见常染色体显性性状:完全外显,群体处于平衡
复等位基因的基因型频率计算
复等位基因:随机交配二倍体的平衡频率
多倍体的基因型频率计算
c 倍体:各拷贝独立取样时,A 的剂量分布
突变、自然选择与遗传漂变
推动演化的因素
适合度
适合度(fitness,w):群体中一个个体相对于其他个体存活并传递其基因到下 一代的能力。适合度具有两个基本成分:存活力(viability)和生殖成功 (reproductive success)
绝对适合度可用某基因型个体对下一代的平均贡献衡量。 除以参照基因型的绝对适合度,可得相对适合度 w。
选择系数 s 表示某基因型相对参照基因型的适合度降低 幅度(参照基因型的相对适合度取 1)。
s=1-w
遗传负荷(genetic load):群体平均适合度相对最高 基因型适合度的降低比例。若最高相对适合度为 1,遗 传负荷等于 1 减去群体平均相对适合度。
突变与选择的共同作用
隐性有害等位基因:正向突变与选择的近似平衡
遗传漂变(genetic drift)
中性漂变:二倍体群体中两份拷贝的共同来源
有效群体大小恒定、无突变时,期望杂合度逐代下降
例:从 A、A、a、a 中取两份拷贝,求不同型的概率
Wright–Fisher 模型中,下一代的等位基因拷贝数只依 赖本代频率。杂合度是频率的二次函数,其期望满足线 性递推。
奠基者效应(founder effect):少数个体建立新群体 时,其等位基因频率可能因随机取样而偏离原群体。
种群瓶颈(population bottleneck):群体数量骤减时, 遗传漂变增强,一些等位基因可能丢失。
新物种形成